دوره 34، شماره 7 - ( مهر 1405 )
جلد 34 شماره 7 صفحات 10487-10473 |
برگشت به فهرست نسخه ها

Ethics code: IR.IAU.ARAK.REC.1403.242


Download citation:
BibTeX | RIS | EndNote | Medlars | ProCite | Reference Manager | RefWorks
Send citation to:


BibTeX | RIS | EndNote | Medlars | ProCite | Reference Manager | RefWorks
Send citation to:
Abaei Hazaveh A, Morady M, Malekipooya M, Abedi B. Changes in the Expression of FOX01 and STRA13 Genes in Adipose Tissue of obese Rats Following Endurance Training and Electrical Stimulation with Calorie Restriction. JSSU 2026; 34 (7) :10473-10487
URL: http://jssu.ssu.ac.ir/article-1-6677-fa.html
URL: http://jssu.ssu.ac.ir/article-1-6677-fa.html
آبایی هزاوه ابوالفضل، مرادی مهدی، ملکی پویا محمد، عابدی بهرام. تغییرات بیان ژن FOX01 و STRA13 بافت چربی موشهای صحرایی چاق متعاقب تمرین استقامتی و تحریک الکتریکی با محدودیت کالری. مجله علمي پژوهشي دانشگاه علوم پزشكي شهید صدوقی يزد. 1405; 34 (7) :10473-10487


متن کامل [PDF 716 kb]
(27 دریافت)
| چکیده (HTML) (37 مشاهده)
References
1. World Health Organization (WHO). Key facts about obesity. https://www.who.int/news-room/fact-sheets/detail/obesity-and-overweight. 2024.
2. Fruh SM. Obesity: Risk factors, complications, and strategies for sustainable long‑term weight management. J Am Assoc Nurse Pract. 2017; 29(S3‑14).
3. Fruhbeck G, Becerril S, Sainz N, Garrastachu P, Garcia-Velloso MJ. BAT: a new target for human obesity? Trends Pharmacol Sci. 2009; 30(8): 387-96.
4. Takeuchi Y, Yahagi N, Aita Y, Mehrazad-Saber Z, Ho MH, Huyan Y, et al. FoxO-KLF pathway switches the flow of macronutrients under the control of insulin. iScience. 2021; 24(12): 103446.
5. Peng S, Li W, Hou N, Huang N. A Review of FOXO1-Regulated Metabolic Diseases and Related Drug Discoveries. Cells. 2020; 9(1): 184.
6. Behl T, Kumar K, Sehgal A, Singh S, Zengin G, Negrut N, et al. Exploring the Genetic Conception of Obesity via the Dual Role of FoxO. Int J Mol Sci. 2021; 22(6): 3179.
7. Chen J, Lu Y, Tian M, Huang Q. Molecular mechanisms of FOXO1 in adipocyte differentiation. J Mol Endocrinol. 2019; 62(3): R239-R5.
8. Ioannilli L, Ciccarone F, Ciriolo MR. Adipose Tissue and FOXO1: Bridging Physiology and Mechanisms. Cells. 2020; 9(4): 849.
9. Gross DN, van der Heide LP, Birnbaum MJ. The role of FoxO in the regulation of metabolism. Oncogene. 2008; 27(16): 2320-36.
10. Kim JJ, Li P, Huntley J, Chang JP, Arden KC, Olefsky JM. FOXO1 haploinsufficiency protects against high-fat diet-induced insulin resistance with enhanced peroxisome proliferator-activated receptor gamma activation in adipose tissue. Diabetes. 2009; 58(6): 1275-82.
11. Sumarwoto T, Suroto H, Mahyudin F, Utomo DN, Romaniyanto, Tinduh D, et al. Role of adipose mesenchymal stem cells and secretome in peripheral nerve regeneration. Ann Med Surg. 2021; 67: 102482.
12. Li Y, Yun K, Mu R. A review on the biology and properties of adipose tissue macrophages involved in adipose tissue physiological and pathophysiological processes. Lipids Health Dis. 2020; 19(1): 164.
13. Prashanth G, Vastrad B, Tengli A, Vastrad C, Kotturshetti I. Investigation of candidate genes and mechanisms underlying obesity associated type 2 diabetes mellitus using bioinformatics analysis and screening of small drug molecules. BMC Endocr Disord. 2021; 21(1): 80.
14. Thyfault JP, Bergouignan A. Exercise and metabolic health: beyond skeletal muscle. Diabetologia. 2020; 63(8): 1464-74.
15. Slopack D, Roudier E, Liu ST, Nwadozi E, Birot O, Haas TL. Forkhead BoxO transcription factors restrain exercise-induced angiogenesis. J Physiol. 2014; 592(18): 4069-82.
16. Sohaily S, Eizadi M, Tarmast D. Effect of resistance training on FOXO1 gene expression in subcutaneous fatty tissue in diabetic wistar rats. J Gorgan Univ Med Sci. 2020; 21(4): 53-9. [In Persian]
17. Tashakkori GM, Nourshahi M, Shariatzadeh JM, Ansari S. The Effects of Aerobic Training with Different Intensity on FOXO1 and STRA13 Genes Expression in Subcutaneous Fat Tissue of Male Wistar Rat. J Ardabil Univ Med Sci. 2022; 22(4): 4-29.
18. Welton S, Minty R, O'Driscoll T, Willms H, Poirier D, Madden S, et al. Intermittent fasting and weight loss: Systematic review. Can Fam Physician. 2020; 66(2): 117-25.
19. Mattson MP, Longo VD, Harvie M. Impact of intermittent fasting on health and disease processes. Ageing Res Rev. 2017; 39: 46-58.
20. Faris MA, Kacimi S, Al-Kurd RA, Fararjeh MA, Bustanji YK, Mohammad MK, et al. Intermittent fasting during Ramadan attenuates proinflammatory cytokines and immune cells in healthy subjects. Nutr Res. 2012; 32: 947-55.
21. Kul S, Savaş E, Öztürk ZA, Karadağ G. Does Ramadan fasting alter body weight and blood lipids and fasting blood glucose in a healthy population? A meta-analysis. J Relig Health. 2014; 53: 929-42.
22. Miyauchi T, Uchida Y, Kadono K, Hirao H, Kawasoe J, Watanabe T, et al. Up-regulation of FOXO1 and reduced inflammation by β-hydroxybutyric acid are essential diet restriction benefits against liver injury. Proc Natl Acad Sci U S A. 2019; 116(27): 13533-42.
23. Yamaza H, Komatsu T, Wakita S, Kijogi C, Park S, Hayashi H, et al. FOXO1 is involved in the antineoplastic effect of calorie restriction. Aging Cell. 2010; 9(3): 372-82.
24. Abell TL, Minocha A, Abidi N. Looking to the Future: Electrical Stimulation for Obesity. Am J Med Sci. 2006; 331(4): 226-32.
25. Greenway F, Zheng J. Electrical stimulation as treatment for obesity and diabetes. J Diabetes Sci Technol. 2007; 1(2): 251-9.
26. Iwami M, Alkayed F, Shiina T, Taira K, Shimizu Y. Activation of brown adipose tissue thermogenesis by electrical stimulation to the dorsal surface of the tissue in rats. Biomed Res. 2013; 34(4): 173-8.
27. Hamida ZH, Comtois AS, Portmann M, Boucher JP, Savard R. Effect of electrical stimulation on lipolysis of human white adipocytes. Appl Physiol Nutr Metab. 2011; 36(2): 271-5.
28. Duarte FO, Sene-Fiorese M, Manzoni MS, de Freitas LF, Cheik NC, Garcia de Oliveira Duarte AC, et al. Caloric restriction and refeeding promoted different metabolic effects in fat depots and impaired dyslipidemic profile in rats. Nutrition. 2008; 24(2): 177-86.
29. Paxton R. Intermittent Fasting For Weight Loss a Beginners: the Secrets of Weight Loss with Total Health and Food Freedom. Edition K, editor. 2019.
30. Guerra-Cantera S, Frago LM, Díaz F, Ros P, Jiménez-Hernaiz M, Freire-Regatillo A, et al. Short-Term Diet Induced Changes in the Central and Circulating IGF Systems Are Sex Specific. Front Endocrinol (Lausanne). 2020; 11: 513.
31. Kazeminasab F, Marandi M, Ghaedi K, Esfarjani F, Moshtaghian J. Effects of a 4-week aerobic exercise on lipid profile and expression of LXRα in rat liver. Cell J. 2017; 19(1): 45-9.
32. Malekipooya M. Response of acute incremental aerobic activity along with electrical stimulation on some markers of angiogenesis in Isoproterenol induced rats. EBNESINA. 2024; 26(1): 28-37.
33. Malekipooya M. The response of fibroblast-derived factor and endostatin to acute rehabilitation of physical activity along with electrical stimulation in infarcted rats. Med J Mashhad Univ Med Sci. 2024; 67: 4.
34. Park J, Shin J, Han SM, Park YJ, Huh JY, Choe SS, et al. Adipocytes Are the Control Tower That Manages Adipose Tissue Immunity by Regulating Lipid Metabolism. Front Immunol. 2021; 11: 598566.
35. Vijayakumar A, Aryal P, Wen J, Syed I, Vazirani RP, Moraes-Vieira PM, et al. Absence of Carbohydrate Response Element Binding Protein in Adipocytes Causes Systemic Insulin Resistance and Impairs Glucose Transport. Cell Rep. 2017; 21: 1021-35.
36. Azad M, Khaledi N, Hedayati M. Effect of acute and chronic eccentric exercise on FOXO1 mRNA expression as fiber type transition factor in rat skeletal muscles. Gene. 2016; 584(2): 180-4.
37. Saki M, Khaledi D, Samarikhalaj H. Changes in FOXO1 gene expression in subcutaneous adipose tissue and lipid profile following high intensity interval training in high fat diet-induced obese rats. Med J Mashhad Univ Med Sci. 2022; 65(4).
38. Rezaei S, Khaledi N. The effect of high intensity interval training on serum TNF-α levels and FOXO1 gene expression of hippocampus in male diabetic Wistar Rats. J Sabzevar Univ Med Sci. 2021; 28(5): 688-99. [In Persian]
39. Akbari E, Fathi B, Sadat B, Askari B. The effect of 6 week resistance training program on FOXO1 expression in liver cells and glucose and insulin levels in type 2 diabetic rats. J Ardabil Univ Med Sci. 2020; 20(3): 328-39. [In Persian]
40. Bedada FB, Nso N, Nwulia EO, Fungwe TV, Nadarajah SR, Obisesan TO. Exercise training-increased FBXO32 and FOXO1 in a gender-dependent manner in mild cognitively impaired African Americans: GEMS-1 Study. Front Aging Neurosci. 2021; 13: 641758.
41. Zhao Q, Feng Z, Qiu L, Che Q, Wang T, Li Y, et al. MdbHLH130, an apple bHLH transcription factor, confers water stress resistance by regulating stomatal closure and ROS homeostasis in transgenic Tobacco. Front Plant Sci. 2020; 11: 543696.
42. Yun Z, Maecker HL, Johnson RS, Giaccia AJ. Inhibition of PPARγ2 gene expression by the HIF-1-regulated gene DEC1/STRA13: a mechanism for regulation of adipogenesis by hypoxia. Dev Cell. 2002; 2(2): 331-41.
43. Chen SH, Chen HC, Hsieh CL, Chao PM. Electric stimulation of ears accelerates body weight loss mediated by high-fat to low-fat diet switch accompanied by increased white adipose tissue browning in C57BL/6J mice. BMC Complement Altern Med. 2018; 18(1): 323.
44. Li Z, de Jonge WJ, Wang Y, Rensen PCN, Kooijman S. Electrical Neurostimulation Promotes Brown Adipose Tissue Thermogenesis. Front Endocrinol (Lausanne). 2020; 11: 567545.
متن کامل: (6 مشاهده)
Original Article
Changes in the Expression of FOX01 and STRA13 Genes in Adipose Tissue of obese Rats Following Endurance Training and Electrical Stimulation with Calorie Restriction
Abolfazl Abaei Hazaveh1 , Mehdi Morady 2 , Mohammad Malekipooya 2 , Bahram Abedi3
1 Department of Exercise Physiology, Maha.C., Islamic Azad University, Mahallat, Iran
2 Department of Exercise Physiology, Ar.C., Islamic Azad University, Arak, Iran
3 Department of Exercise Physiology, NT.C., Islamic Azad University, Tehran, Iran
Abstract
Corresponding author: Department of Exercise Physiology, Ar.C., Islamic Azad University, Arak, Iran
Email: drmoradi59@iau.ac.ir
mo.malekipooya@iau.ac.ir
Tel: +989188601487
Postal Code:3836119131
Received: 29 Apr 2026
Revised: 30 Jun 2026
Accepted: 5 Aug 2026
How to Cite this Article:
Abaei Hazaveh A, Morady M, Malekipooya M, Abedi B. Changes in the Expression of FOX01 and STRA13 Genes in Adipose Tissue of Obese Rats Following Endurance Training and Electrical Stimulation with Calorie Restriction. J Shahid Sadoughi Uni Med Sci 2026; 34(7): 10473-487.
Introduction: Obesity represents an increasing disease and a cause of cardiovascular diseases, hypertension, hyperlipidemia, diabetes and cancer. Therefore, the aim of the present study was designed to investigate the changes in the expression of FOX01 and STRA13 genes within the adipose tissue of obese rats following endurance training and electrical stimulation with calorie restriction.
Methods: In this controlled experimental study, 35 male rats (8 weeks, weighing 200±19g) were randomly allocated into five equal cohorts of seven following the induction of obesity and weight gain: non-fasting, fasting alone, fasting with endurance exercise, fasting with electrical stimulation, and fasting combined with both endurance exercise and electrical stimulation. The groups were subjected to training (speed 10 to 20m/min and duration 20 to 40min), electrical stimulation (foot shock device 0.5mA and 20min) and fasting (8 to 16 hours) for four weeks. After exercise and anesthesia, adipose tissue was sampled and after performing molecular processes, gene expression was measured using PCR machine. Statistical evaluations were conducted using two-way analysis of variance at a significance level of p<0.05 with GraphPad software.
Results: The results showed that endurance training, as well as its combination with electrical stimulation, led to an increase in FOX01 and a significant decrease in STRA13 expression in rats compared to the control group (P=0.0001 and P=0.001, respectively). Furthermore, electrical stimulation alone also induced a significant increase and decrease in FOX01 and STRA13 genes (P=0.0001).
Conclusion: That seems that endurance training in fasted obese samples has had positive effects on fasted obese samples by reducing STRA13 and converting white adipose tissue into brown tissue.
Keywords: Obesity, Fasting, Endurance Training, Electrical Stimulation, FOX01, STRA13.
This work is licensed under a Creative Commons Attribution 4.0 Unported License which allows users to read, copy, distribute and make derivative works for non-commercial purposes from the material, as long as the author of the original work is cited properly.
Extended Abstract
Introduction
Obesity is a growing disease and a contributing factor to cardiovascular disease, hypertension, hyperlipidemia, diabetes, and cancer. (1). Obesity is defined as the excessive growth of adipose tissue resulting from an increase in the number and size of adipocytes. The human body comprises different types of adipocytes—classified as white, brown, and beige (brown-like) adipose tissue—which participate in vital processes such as metabolism, fat storage, and thermogenesis. In this context, the FOXO1 and STRA13 genes are directly linked to energy metabolism and play a significant role in both brown and white adipose tissue (3, 11). Consequently, engaging in aerobic exercise is among the primary recommendations for the prevention and rehabilitation of these patients. Furthermore, Islamic teachings advocate for fasting and caloric restriction to promote health and manage weight, particularly for overweight and obese individuals. Fasting regimens have recently gained attention and are being utilized for weight loss (18). Finally, electrical stimulation—distinct from physical activity and fasting—is recognized as another modality for weight loss and was employed in the present study (24).
Methods
This experimental study utilized 35 eight-week-old Wistar rats (weighing 200±19g), which were kept in the laboratory for two weeks under controlled conditions of 22±2°C, 12 hours of light and 12 hours of darkness, and 50±5 humidity prior to the intervention. Following this period, the rats were randomly divided into five groups of 7 animals including a moderate intensity aerobic exercise group (MIT), an electrical stimulation group (ES), an aerobic exercise-electrical stimulation group (MIT.ES), a calorie-restricted control group (FA; fasting), and a control group without calorie restriction (CO). The groups (excluding the control groups) participated in an intervention protocol for four weeks. The animals were placed on a high-calorie diet for approximately eight weeks and became obese. From the beginning of the training program, the groups were fasted from 6:00 AM to 6:00 PM [29]. Peanuts, milk chocolate and sweet biscuits were used in the ratio of 3:2:2:1 to fatten the animals [28]. The aerobic exercise protocol was of moderate intensity for 4 weeks with a speed of 20-29 m/min in the second week 20 m/min, in the third week 25 m/min, in the fourth week 27/min and in the fifth week 29/min, 5 days a week, for 60 minutes with an intensity of 55-60% Vo2max and a zero-degree slope according to Table 1 [29]. The electrical stimulation protocol (ES) was applied using a stimulator connected to the foot shock device with 0.5 mA. For four weeks, 5 sessions per week, 20 minutes of electrical stimulation were performed per session [32, 33]. At the end of the intervention, all rats were anesthetized 24 hours after the final exercise and electrical stimulation session. Subsequently, samples of leg adipose tissue were analyzed to evaluate gene expression.
Results
Descriptive and analytical statistics regarding FOXO1 levels following MIT and ES interventions are presented in Table 3. Figure 1 illustrates the relative expression levels of the FOXO1 gene across the study groups. Analysis of variance (ANOVA) revealed significant differences between the groups. Tukey’s post-hoc test indicated a significant increase in the MIT group compared to the FA and CO groups (F=2.7, P=0.001). Furthermore, endurance training (MIT) and its combination with electrical stimulation (ES) resulted in a significant upregulation of this gene compared to all other study groups (F=21, P=0.0001). The ES group showed a significant increase compared to the FA group (F=5.3, P=0.006) and a significant decrease compared to the MIT+ES group (F=18, P=0.0001); however, no significant difference was observed between the ES group and the MIT or CO groups (F=4.3, P=0.521).
Descriptive and analytical statistics regarding STRA13 levels following MIT and ES interventions are presented in Table 4. Figure 2 illustrates the expression levels of the STRA13 gene across the study groups. ANOVA revealed significant differences between the groups. Tukey’s post-hoc test indicated a significant decrease in the MIT group compared to the CO, FA, and MIT+ES groups (F=39, P=0.0001), but no significant difference was observed when compared to the ES group (F=0.29, P=0.999). Furthermore, endurance training—and its combination with electrical stimulation—resulted in a significant decrease in the expression of this gene compared to the control (CO) group (F=27, P=0.0001) and a significant increase compared to the ES and MIT groups (F=31, P=0.0001). Finally, no significant differences were observed between the MIT and ES groups, nor between the MIT+ES and FA groups (F=1.1, P=0.847).
Conclusion
It appears that endurance training, electrical stimulation, and their combination—in conjunction with caloric restriction—have proven effective in thermogenesis (via the conversion of white adipose tissue to brown adipose tissue) and weight control in obese subjects, by reducing and suppressing STRA13 gene expression; however, further studies are required in this regard.
مقاله پژوهشی
تغییرات بیان ژن FOX01 و STRA13 بافت چربی موشهای صحرایی چاق متعاقب تمرین استقامتی و تحریک الکتریکی با محدودیت کالری
ابوالفضل آبایی هزاوه 1 ، مهدی مرادی 2 ، محمد ملکی پویا 2 ، بهرام عابدی 3
1 گروه فیزیولوژی ورزشی، واحد محلات، دانشگاه آزاد اسلامی، محلات، ایران
2 گروه فیزیولوژی ورزشی، واحد اراک، دانشگاه آزاد اسلامی، اراک، ایران
3 گروه فیزیولوژی ورزش، واحد تهران شمال، دانشگاه آزاد اسلامی، تهران، ایران
چکیده
نویسنده مسئول
مهدی مرادی و محمد ملکی پویا، گروه فیزیولوژی ورزشی، واحد اراک، دانشگاه آزاد اسلامی، اراک، ایران
پست الکترونیک:
drmoradi59@iau.ac.ir
mo.malekipooya@iau.ac.ir
تلفن: 09183636948
صندوق پستی: 3836119131
تاریخ دریافت: 9/2/1405
تاریخ بازنگری: 9/4/1405
تاریخ پذیرش: 14/5/1405
ارجاع:
آبایی هزاوه ابوالفضل، مرادی مهدی، ملکیپویا محمد، عابدی بهرام. تغییرات بیان ژن FOX01 و STRA13 بافت چربی موشهای صحرایی چاق متعاقب تمرین استقامتی و تحریک الکتریکی با محدودیت کالری. مجله علمی پژوهشی دانشگاه علوم پزشکی شهید صدوقی یزد. 1405؛ 34 (7): 487-10473.
مقدمه: چاقی یک بیماری فزاینده و عامل بیماریهای قلبیعروقی، پرفشاری خونی، چربی خون، دیابت و سرطان است. لذا هدف از پژوهش حاضر بررسی تغییرات بیان ژنها FOX01 و STRA13 بافت چربی موشهای صحرایی چاق متعاقب تمرین استقامتی و تحریک الکتریکی با محدودیت کالری بود.
روش بررسی: در این مطالعۀ تجربی کنترل شده با گروه شاهد 35 سر موش صحرایی نر ویستار (8 هفتهای با وزن 19±200 گرم) پس از القاء چاقی و افزایش وزن بهطور تصادفی به 5 گروه 7تایی بدون محدودیت کالری، محدودیت کالری، محدودیت کالری-تمریناستقامتی، محدودیت کالری-تحریکالکتریکی و محدودیت کالری-تمریناستقامتی-تحریکالکتریکی تقسیم شدند. گروههای برای چهار هفتهای تحت تمرین استقامتی (سرعت 10 تا 20 متر/دقیقه و مدت 20 تا 40 دقیقه)، تحریکالکتریکی (دستگاه فوت شوک 5/0 میلی آمپر و 20 دقیقه) و محدودیت کالریی (8 به 16 ساعت) قرار گرفتند. پس از تمرین و بیهوشی، نمونهبردای بافت چربی صورت گرفت و پس از انجام فرایندهای ملکولی بیان ژنها با استفاده از دستگاه PCR اندازهگیری شد. برای آنالیز دادهها از آزمون تحلیل واریانس دوطرفه در سطح معنیداری 05/0>p و نرمافزار گرافپد استفاده شد.
نتایج: نتایج نشان داد تمرین استقامتی و تلفیق آن با تحرک الکتریکی منجر به افزایش معنیدار FOX01 (0001/0=(P و کاهش معنیدار ) STRA13 001/0=P) موشهای صحرایی نسبت به گروه کنترل شد. همچنین تحریک الکتریکی منجر به افزایش (0001/0=P) و کاهش معنیدار (0001/0=P) ژنهای FOX01 و TRA13 گردید.
نتیجهگیری: بهنظر میرسد تمرین استقامتی در نمونههای چاق محدودیت کالری با کاهش STRA13 و تبدیل بافت چربی سفید به بافت قهوهای شود اثرات مثبتی بر نمونه های چاق روزه دار به همراه داشته است.
واژههای کلیدی: چاقی، محدودیت کالری، تمرین استقامتی، تحریک الکتریکی،FOX01 ، STRA13.
مقدمه
براساس تعریف سازمان بهداشت جهانی چاقی یک بیماری مزمن پیچیده است که با رسوب بیش از حد چربی تعریف شده سلامت جامعه را مختل و خطر ابتلا به دیابت نوع 2، بیماریهای قلبی، استخوانی، تولیدمثل و ابتلا به برخی از سرطانها را افزایش میدهد. براساس گزارش این سازمان، در سال 2022، از هر 8 نفر 1 فرد مبتلا به چاقی میباشد. این بیماری در سراسر جهان از سال ۱۹۹۰ بیش از دو برابر رشد داشته و 13 درصد جمعیت جهان را درگیر کرده که بسیار نگران کننده میباشد. همچنین در نوجوانان نیز چهار برابر افزایش داشته است. بیش از 390 میلیون کودک و نوجوان 5 تا 19 ساله در سال 2022 دارای اضافه وزن بودند، که 160میلیون نفر از آنها به چاقی دچار شدهاند (1). در ایران نیز چاقی و اضافه وزن تا سال ۲۰۱۵ نزدیک به ۱۱ و ۱۸ میلیون نفر را تحتتأثیر قرار داده و در سال ۲۰۲۱ تقریباً ۲۱ درصد رشد بههمراه داشته است. چاقی از دلایل مستقیم و غیرمستقیم بیماریهای مزمن و مهمی مانند قلبیعروقی، فشار خون بالا، دیابت، سرطان، سندرم متابولیک، کلیه، سکته مغزی، استئوآرتریت، آپنه، افسردگی، اضطراب غیره بوده و منجر به کاهش 10 سال از عمر انسان میگردد (2). چاقی بهعنوان رشد اضافی بافت چربی (Adipose Tissue -AT) در نتیجه افزایش تعداد و اندازه سلولهای ادیپوسیتها تعریف شده است. بدن انسان از انواع متفاوتی از ادیپوسیتها با نام بافت چربی سفید (WAT-White Adipose Tissue)، قهوهای (Brown Adipose Tissue -BAT) و شبه قهوهای (بژ یا برایت BLA) تشکیل شده و در فرآیندهای مهمی مانند متابولیسم، ذخیره چربی و گرمازایی مشارکت دارد (3). مطالعات ژنی متفاوتی در سالهای اخیر برای بررسی نقش ژنهای درگیر در پاتوفیزیولوژی چاقی انجام شده است. در میان این تحقیقات پروتئین جعبه سرچنگالی- O1(Forkhead Box Protein O1) که توسط ژن FOXO1کدگزاری میشود بهعنوان یکی از ﺧﺎﻧﻮاده ﻓﺎﮐﺘﻮرﻫﺎی رونویسی درگیر در متابولیسم انرژی معرفی شده و نقش مهمی در ﻫـﺮ دو ﺷـﮑﻞ ﭼﺮﺑـﯽ ﻗﻬـﻮهای و ﺳـﻔﯿﺪ ایﻔـﺎ ﻣﯽﮐﻨﺪ. هر چند FOXO1 یک تنظیم کننده مرکزی در چند نوع سلول از جمله سلولهای چربی بوده و به وفور یافت میشود، ولی عملکردهای بیولوژیکی آن در این سلولها تا حد زیادی ناشناخته مانده است (4). بیﻧﻈﻤـﯽ در ﺑﯿـﺎن ژن FOXO1 ﺑﻪ ﺑﺴﯿﺎری از ﺷﺮایﻂ ﻣﺘﺎﺑﻮﻟﯿﮏ، ﺑـﻪویـﮋه ﭼـﺎﻗﯽ ﻣﻨﺠـﺮ شده و تأثیر مهمی بر فیزیولوژی و پاتولوژی اختلالات متابولیکی مانند چاقی دارند (5،6) بهطور طبیعی این ژن در بافتها و اندامهای حساس به انسولین مانند چربی، کبد، پانکراس و عضلات اسکلتی بیان شده (5،7) و بسیاری از مسیرهای متابولیکی مهم در این اندامها را تنظیم میکند (8)FOXO1 . به میزان بالایی در آدیپوسیتها بیان شده و بر فعالیتهای متابولیکی بافت چربی از جمله لیپوژنز اثر گذار است (7). بهطورکلی میتوان گفت FOXO1 بهعنوان یک عامل ضد چاقی شناخته شده است که در بهبود متابولیسم چربی، حفظ هموستاز ردوکس و در نتیجه مقابله با پاتولوژیهای همچون چاقی و دیابت نوع 2 نقش اساسی ایفا میکند (8). از طرفی اختلال عملکرد مسیرهای FOXO1به بروز بیماریهای متابولیکی از جمله چاقی، دیابت، بیماری کبد چرب غیر الکلی و آترواسکلروز منجر میشود (5). در افراد چاق یا دیابتی بیان ژن وابسته به FOXO1 برخی ویژگیهای زیانآور مرتبط با چاقی و دیابت، از جمله هیپرگلیسمی و عدم تحمل گلوکز را افزایش میدهد (9). از طرفی با توجه به یافتههای پژوهشی موجود بهنظر میرسد کاهش بیان ژن FOXO1 میتواند به بهبود فرآیندهای متابولیکی مرتبط با چاقی و اضافه وزن منجر شود. در این زمینه گزارش شده است که در موشهای صحرایی چاق شده با رژیم غذایی پر چرب، کاهش بیان FOXO1 با مقاومت انسولین مرتبط با چاقی مقابله میکند (10). ژن محرک رتینوئیک اسید-13 (STRA13- Stimulated with Retinoic Acid 13) یک ﻣﻬﺎرﮐﻨﻨﺪ اﺳﺖ و ﮔﺴﺘﺮش ﺑﺎﻓﺖ ﭼﺮﺑـﯽ در ﺑـﺪن را ﮐﺎﻫﺶ ﻣﯽدﻫﺪ (11). اﮔﺮﭼﻪ ﺑﺎﻓﺖﭼﺮﺑﯽ ﻣﻮﺟﺐ ﺗﺮﺷﺢ آدیﭙﻮﺳﺎیﺘﻮﮐﺎیﻦﻫﺎی ﭘیﺶ اﻟﺘــﻬﺎﺑﯽ؛ ﻧﻈﯿﺮ ایﻨﺘﺮﻟﻮﮐﯿﻦ-6، ﻓﺎﮐﺘﻮر ﻧﮑﺮوز دﻫﻨﺪه ﺗﻮﻣﻮر-آﻟﻔﺎ و ﻟﭙﺘﯿﻦ ﻣـﯽﺷـﻮد اﻣﺎ ایـﻦ ﻣﺎﮐﺮوﻓﺎژﻫـﺎی ﻣﺴـﺘﻘﺮ در ﺑﺎﻓـﺖ ﭼﺮﺑـﯽ ﻫﺴﺘﻨﺪ ﮐﻪ ﻣﻨﺒﻊ اوﻟﯿﻪ ﺳﺎیﺘﻮﮐﺎیﻦﻫﺎی اﻟﺘﻬـﺎﺑﯽ در ﭼـﺎﻗﯽ ﺑﻪﺣﺴﺎب ﻣﯽآیﻨﺪ (12). STRA13 یـﮏ ﻓﺎﮐﺘﻮر روﻧﻮیﺴﯽ bHLH اﺳﺖ ﮐﻪ در ﺗﻌﺪادی از اﻧﻮاع ﺳﻠﻮلﻫﺎ ﺑﯿﺎن ﻣﯽﺷﻮد. ﺑﯿﺎن ایﻦ ژن ﺗﻮﺳﻂ ﭼﻨﺪیﻦ ﻣﺤﺮک در اﻧﻮاع ﺳﻠﻮلﻫﺎی ﻣﺨﺘﻠﻒ اﻟﻘﺎ ﻣـﯽﺷـﻮد و ﺑـﺎ اﻓﺰایﺶ ﻓﻌﺎﻟﯿﺖ در ﺳﻠﻮلﻫﺎ، در ﺗﻨﻈـﯿﻢ ﺗﻤـﺎیﺰ ﺳـﻠﻮﻟﯽ، ﺗﻐﯿﯿﺮ ﭼﺮﺧﻪ ﺳﻠﻮﻟﯽ، ﭘﺎﺳﺦ ﺑﻪ اﺳﺘﺮس و آﭘﻮﭘﺘـﻮز ﻧﻘـﺶ ﻣﻮﺛﺮی دارد (6). ﺑﻪﻧﻈﺮ ﻣﯽرﺳـﺪ، ﺑﺮﻧﺎﻣـﻪﻫـﺎی ﺗﻤﺮیﻨــﯽ ﺑــﺎ ﮐــﺎﻫﺶ ﺗﻌــﺪاد ﺳــﻠﻮلﻫــﺎی ﭼﺮﺑــﯽ، ﺑﻬﺒــﻮد ﻋﻤﻠﮑﺮد ﺗﺮﺷﺤﯽ ﺳﻠﻮلﻫﺎی ﭼـﺮب و ﮐـﺎﻫﺶ ﻣﺤﺘـﻮای ﻣﺎﮐﺮوﻓﺎژﻫــﺎی ﺑﺎﻓــﺖﭼﺮﺑــﯽ، در ﺗﻌــﺪیﻞ ﺳــﻄﻮح آدیﭙﻮﮐــﺎیﻦﻫــﺎی ﺗﺮﺷــﺢ ﺷــﺪه از ﺑﺎﻓــﺖﭼﺮﺑــﯽ ﻧﻘــﺶ ﺑﻪﺳـﺰایﯽ داﺷـﺘﻪ ﺑﺎﺷـﺪ (13). ﻓﻌﺎﻟﯿـﺖ ورزﺷـﯽ ﺗﺒـﺪیﻞ ﺑﺎﻓﺖﭼﺮﺑﯽ ﺳﻔﯿﺪ ﺑﻪ ﭼﺮﺑـﯽ ﻗﻬـﻮهای ﮐـﻪ دو ﭘـﺮوﺗﺌﯿﻦ PRDM16 و PPAR-γ در ایــﻦ اﻣــﺮ ﻧﻘــﺶ ﻣﻬﻤــﯽ دارﻧﺪ را ﺗﺴﻬﯿﻞ ﻣﯽﮐﻨﺪ. ایﻦ ﺳﺎزﮔﺎریﻫﺎی ﻧﺎﺷـﯽ از ﺗﻤﺮیﻨﺎت ورزﺷﯽ ﺑﺎﻋﺚ اﻓﺰایﺶ ﻟﯿﭙﻮﻟﯿﺰ ﺑﺎﻓﺖ ﭼﺮﺑـﯽ ﻣﯽﺷﻮد (14). از اینرو انجام فعالیتهای ورزشی هوازی (MIT- Moderate Intensity Training) از اولین توصیهها برای پیشگیری و بازتوانی این بیماران است. اسلاپک و همکاران در سال 2014 در پژوهش خود گزارش کردند متعاقب با یک جلسه تمرین استقامتی در عضله اسکلتی موش های صحرایی بیان ژن FOXO1 ئافزایش معنیدار نشان داد (15). از طرفی نتایج مطالعه سهیلی و همکاران در سال 2020 نشان داد که یک دوره تمرینات هوازی سبب کاهش بیان ژن FOXO1 شد (16). در پژوهش از تشکری و همکاران در سال 2022 نشان داده شد تمرینات متفاوت ورزشی منجر به کاهش معنیدار مقادیر ژن STRA13 بافت چربی زیر پوستی موش های صحرایی شد (17). از دیگر روشهای که در دین اسلام برای سلامتی و محدودیت در کالری، بهویژه افراد دارای اضافه وزن و چاق توصیه شده روزهداری و محدودیت در کالری است. ماه مبارک رمضان را میتوان فرصتی مناسب برای جلوگیری از خطر افزایش وزن و کاهش چاقی در بین مردم مطرح کرد. در حال حاضر رژیم روزهداری مورد توجه قرار گرفته و در کاهش وزن از آن استفاده میشود (18). تاثیر روزهداری بر ترکیب بدنی، تغییرات هورمونی و عوامل التهابی و ریسک فاکتورهای قلبیعروقی در برخی از تحقیقات تایید شده است (19). در مطالعه فارسی و همکاران در سال 2012 نشان داده شده وزن، BMI و چربی بدن در هفته سوم ماه رمضان در مقایسه با یک هفته قبل یا بعد از روزهداری رمضان کاهش معنیداری داشته است (20). همچنین آنالیز و تجزیه و تحلیل متابولیسم لیپیدی قبل از ماه رمضان در مقایسه با مقادیر پس از ماه رمضان نشان داد، تریگلیسیرید در مردان، LDL در هر دو جنس کاهش و HDL در زنان افزایش یافت (21). در پژوهش میایوچی و همکارانش در سال 2019 گزارش شد محدودیت کالری موجب افزایش مقادیر ژن FOXO1 بویژه در برابر اسیبهای کبدی می شود (22). همچنین در تحقیق دیگری از یامازا و همکارانش در سال 2010 نشان داده شده محدودیت کالری می تواند با افزایش ژن FOXO1 می تواند اثرات ضد آنتی نئوپلاستیکی به همراه داشته باشد (23). لذا در پژوهش فوق بهعنوان یک مداخله در افراد چاق و دارای اضافه وزن بهعنوان یک مسئله مورد بررسی قرار گرفته است. همچنین استفاده از تحریک الکتریکی (ES- Electrical Stimulation) جدایی از فعالیت بدنی و روزهداری بهعنوان یک مدالیته دیگر در کاهش وزن مورد تایید است (24). در کنار تمرینات استقامتی ES موجب فراخوانی حداکثری واحدهای عضلانی و کاهش بافت چربی میشود (25). ایوانی و همکاران در سال 2013 نشان دادند ES منجر به افزایش ترموژنز بافتهای چربی BAT میگردد (26). همچنین تحقیقات همیدا و همکاران در سال 2011 نیز نشان داده شد ES موجب القای لیپولیز سلولهای چربی میگردد (27). با توجه به مطالعات انجام شده انتظار میرود ES در کنار فعالیت بدنی یک مداخله جدیدی برای توانبخشی بیماران چاق باشد. پژوهشگران، تحقیقی که در آن به بررسی ژنها FOX01 و STRA13 با فعالیتهای بدنی، روزهداری (Fasting-FA) و تحریکالکتریکی در نمونههای چاق در بافت چربی احشایی باشد مشاهده نکردند. بحث فاکتورهای موثر بر فرآیند لیپولیز و میانجیها و چگونگی تاثیرپذیری آن به فعالیتهای ورزشی، روزهداری و تحریکالکتریکی کاملاً جدید است و مطالعهای در این زمینه صورت نگرفته و نظریۀ واحدی نیز در این خصوص وجود ندارد. ﺑﺎ ﺗﻮﺟﻪ ﺑﻪ ﭘﯿﺸﯿﻨﻪ و ﻧﺘﺎیﺞ متفاوت پژوهشی، ایﻦ ﮐﻪ ﺗﻤﺮیﻨﺎت ﻫﻮازی متعاقب متغیرهای مستقل تحقیقی ﻣﯽﺗﻮاﻧﻨﺪ با تاثیرگزاری بر ادیپوسیتها منجر به چربیسوزی شود به مطالعه بیشتری نیاز است. ﻟﺬا ﺑﻪدﻟﯿﻞ در دﺳـﺖ ﻧﺒﻮدن مطالعهای در ارتباط با مسئله فوق، ﻣﺤﻘﻖ ﺑﻪدﻧﺒﺎل ﭘﺎﺳﺨﮕﻮیﯽ ﺑﻪ این مسئله است که آیا تغییرات بیان ژنهای FOX01 و STRA13 بافت چربی موشهای صحرایی چاق متعاقب تمرین استقامتی و تحریک الکتریکی با محدودیت کالری معنیدار است.
روش بررسی
در این پژوهش پسآزمون با گروه کنترل، با استفاده از نرم افزار جی پاور از 35 سر موش صحرایی نر نژاد ویستار هشت هفتهای با میانگین وزنی 19±200 گرم که از دانشگاه بقیهاله ایران خریداری شده بود استفاده گردید. این حیوانات در قفسهای پلیکربنات شفاف و در شرایط کنترل شده با دمای 2±22 درجه سانتیگراد، رطوبت 5±50 درصد و چرخۀ روشنایی-تاریکی 12:12 ساعت با دسترسی کنترل شده با آب و غذای ویژه موشهای صحرایی نگهداری شدند. پس از انتقال حیوانات به محیط پژوهش به مدت یک هفته جهت سازگاری با محیط آزمایشگاه بدون مداخلهای در شرایط جدید نگهداری شدند. در ادامه پرتکل القا چاقی شروع شد و سپس موشهای صحرایی چاق شده بهطور تصادفی به پنج گروه چاق هفتتایی، 1-بدون محدودیت کالری (CO-Control)، 2- با محدودیت کالری (FA)، 3- محدودیت کالری-تمرین استقامتی (MIT)، 4- محدودیت کالری-تحریک الکتریکی (ES) و 5- محدودیت کالری تمرین استقامتی+ تحرک الکتریکی (MIT.ES) تقسیم شدند. برای افزایش وزن حیوانات از رژیم غذایی استاندارد با برنامه غذایی پرچرب موشهای صحرایی که از بادام زمینی، شکلات شیری و بیسکویتهای شیرین بهنسبت 3:2:2:1 تشکیل شده بود استفاده شد. این رژیم حاوی 20 گرم پروتئین، 20 گرم چربی، 48 گرم کربوهیدرات، چهار گرم فیبر بوده که در هر 100 گرم رژیم غذایی مخلوط و سپس آسیاب و در اختیار آنها قرار گرفت تا بر حسب شاخص لی وزن موشهای صحرایی در محدود 310 گرم قرار گیرد (28). پس از القا چاقی کلیه گروههای پژوهشی (بهجز کنترل) تحت برنامه محدودیت غذایی (هشت ساعت محدودیت -16 ساعت بدون محدویت کالری) (29) و با غذای استاندارد (23 گرم پروتئین، 49 گرم کربوهیدرات، چهار گرم چربی و پنج گرم فیبر در هر 100 گرم) قرار گرفتند. همچنین آب مورد نیاز هر حیوان بهصورت آزاد و در بطریهای 500 میلیلیتری ویژه حیوانات آزمایشگاهی در ساعات غیر روزهداری با رعایت دیگر پرتکلها در اختیار حیوانات قرار گرفت (30). مرحلۀ آشناسازی موشهای صحرایی با تردمیل در هفتۀ دوم، به مدت یک هفته، هفتهای پنج روز، هر روز به مدت 10 دقیقه و با سرعت 10 متر/دقیقه انجام شد. این میزان تمرین در حدی نیست که منجر به تغییرات بارزی در ظرفیت هوازی نمونههای تحقیقی شود. برای دویدن موشهای صحرایی از طریق صدا و تحریک شرطیسازی استفاده شد تا از نزدیک شدن، استراحت و برخورد با بخش شوک الکتریکی در بخش انتهای دستگاه خودداری کنند. پس از سازگاری، القا چاقی و آشناسازی با تردمیل، ابتدای به مدت پنج دقیقه، با سرعت ۱۰ متر/دقیقه و با شیب صفر درجه عمل گرم کردن انجام شد. تمرین استقامتی روی نوارگردان برای چهار هفته، هر هفته پنج جلسه، هر جلسه به مدت 60 دقیقه، با سرعت 20 تا 29 متر/ دقیقه و شدت بین 54 تا 65 درصد حداکثر اکسیژن مصرفی انجام شد (جدول 1). سرد کردن هم همانند گرم کردن بعد از پایان تمرین انجام شد (31). برای ایجاد ES در این پژوهش از دستگاه استیمولیتور R12 ساخت شرکت پرتو دانش استفاده شد. میزان شدت جریان الکتریسیته در این برنامه 5/0 میلیآمپر، به مدت 20 دقیقه و 3 روز در هفته در نظرگرفته شد. جریان از طریق خروجیهای استیمولیتور به دستگاه فوت شوک (Footshock) ارسال گردید. برنامه ES بعد از تمرین استقامتی و در داخل جعبه فوت شوک انجام شد (32،33). گروهها دو روز پس از پایان پروتکل تمرین و تحریک با ترکیبی از کتامین (75 میلیگرم/کیلوگرم) و زایلازین (10 میلیگرم/کیلوگرم) به روش درون صفاقی بیهوش و کشته شدند. در کلیه مراحل مختلف پژوهش ضمن رعایت مسائل اخلاقی سعی شد از هر گونه آزار جسمی و روشهای غیر ضروری اجتناب شود. سپس نمونه بافت چربی احشایی موشهای صحرایی برداشته و ﺑﺎ اﺳﺘﻔﺎده از ﻣﺤﻠﻮل بافر فسفات سالین (PBS) ﺷﺴﺘﺸﻮ شد و بلافاصله بعد از آن در ازت مایع منجمد گردید. این بافت تا زمان استخراج RNA به فریزر با دمای منفی80 درجۀ سانتیگراد انتقال داده شد. برای شروع ارزیابی ملکولی ابتدا بافتهای چربی از فریزر خارج و کوبیده شد. به پودر ناشی از بافت هموژن 700 میکرولیتر بافر محلول (LR) و 5/3 میکرولیتر محلول بتامرکاپتواتانول (β-ME مرک آلمان) اضافه و نمونهها برای یک دقیقه ورتکس شدند. در ادامه به نمونهها 200 میکرولیتر کلروفرم (TCM مرک آلمان) اضافه گردید و 30 ثانیه ورتکس مجدد انجام شد. سپس میکروتیوبهای حاوی ترکیبات فوق برای 3 دقیقه در دمای اتاق انکوبه و در سانتریفوژ (ﺳﯿﮕﻤﺎ آﻣﺮیکا) برای10 دقیقه با 11 هزار دور/ دقیقه قرارداده شد. در ادامه 400 میکرولیتر از فاز رویی محلول به یک میکروتیوب جدید انتقال داده و با 400 میکرولیتر اتانول مطلق (EA مرک آلمان) میکس گردید و مجدد سانتریفوژ انجام شد. پس از خروج محلول داخلی کلکتور، عمل واشینگ برای دو بار تکرار گردید و سانتریفوژ شد. ستون استخراج شده به یک میکروتیوب جدید انتقال و با محلول 50 میکرولیتر ایلوشن بافر (BS سیگما الدریچ آلمان) ترکیب گردید. محلول حاصل سانتریفوژ شده و سپس RNA استخراج و در یخچال برای مراحل دیگر نگهداری شد. ﻣﻄﺎﺑﻖ ﭘﺮوﺗﮑﻞ ﺷﺮﮐﺖ ﺳﺎزﻧﺪ (Fermentas, K1622, USA) بهازای استخراج هر RNA یک میکروتیوب جدید در نظر گرفته شد. بر حسب میکروتیوبهای حاوی RNA معادل یک نانوگرم ترکیب بافر 10 میکرولیتر و دو میکرولیتر آنزیم اضافه گردید تا حجم نهایی با افزودن آب دپس (DW) به 20 میکرولیتر افزایش یابد. سپس میکروتیوبهای حاوی ترکیبات فوق به مدت زمان 10 دقیقه در 25 درجه سانتیگراد،60 دقیقه در 47 درجه سانتیگراد و در نهایت پنج دقیقه در 85 درجه سانتیگراد انکوبه شد. در انتها نمونهها با استفاده از دستگاه نانودراپ (سونی مدل 2048) از نظر کمی و کیفی بررسی و همچنین کیفیت DNA نمونهها نیز بر روی ژل الکتروفورز لود و مورد بررسی قرار گرفت. واکنش زنجیره پلیمراز PCR با استفاده از دستگاه لایو تکنولوژی آمریکا و مواد اولیه شرکت کیاژن در آزمایشگاه دانشگاه ... انجام گردید. در همین راستا مقدار 5/6 میکرولیتر آب دپس، 10 میکرولیتر مسترمیکس، 5/0 میکرولیتر روکس، دو میکرولیتر پرایمر پیشرو و معکوس با یک میکرولیتر cDNA ترکیب گردید تا یک محلول 20 میکرولیتری تشکیل گردد. این ترکیب در دستگاه ریلتایم با دما و سیکلهای متفاوت مورد تجزیه و تحلیل قرار گرفت. توالی پرایمرها نیز از پایگاه دادههای مرکز ملی اطلاعات بیوتکنولوژی (NCBI) تهیه و سپس طراحی پرایمرهای هر دو ژن با استفاده از برنامۀ پرایمر مورد بررسی قرار گرفت که، در (جدول 2) آمده است.
جدول 1: برنامه تمرین استقامتی
جدول 2: پرایمرهای بهکار رفته در PCR
بیان کمی نتایج ژنهای FOXO1 و STRA13 با روش 2^(-ΔΔCt) انجام شد و همچنین توزیع نرمال آن با آزمون شاپیرو-ویلک تحت بررسی قرار گرفت. برای مقایسه میانگین بین گروهها، از آنالیز واریانس (آنووآ) دوطرفه و آزمون تعقیبی توکی استفاده شد. تجزیهوتحلیلهای آماری با استفاده از نرمافزار آماری گرافپد (نسخه 8) در سطح معنی¬داری (05/0p<) و سطح اطمینان 95% انجام شد.
نتایج
آمار توصیفی و تحلیلی سطوح FOXO1 با توجه به مداخلۀ MIT و ES در (جدول 3) ارائه شده است. همچنین (شکل 1) مقدار نسبی بیان ژن FOXO1 در گروههای مورد مطالعه را نشان میدهد. آزمون تحلیل واریانس تفاوت معنیداری بین گروهها نشان داد. نتایج ناشی از آزمون تعقیبی توکی افزایش معنیداری بین MIT نسبت به گروههای FA و CO نشان داد (7/2F= و 001/0P=). همچنین تمرین استقامتی و تلفیقی از آن با تحریک الکتریکی منجر به افزایش معنیداری این ژن نسبت به کلیه گروههای تحقیقی شد (21F= و 0001/0P=). همچنین گروه ES نسبت به FA افزایش معنیدار (3/5F= و 006/0P=) و نسبت به MIT.ES کاهش معنیداری از خود نشان داد (18F= و 0001/0P=). اما ES با گروه MIT و CO این تفاوت معنیدار نبود (3/4F= و 521/0P=). آمار توصیفی و تحلیلی سطوح STRA13 با توجه به مداخلۀ MIT و ES در جدول 4 ارائه شده است. همچنین (شکل 2) مقدار بیان ژن STRA13 در گروههای مورد مطالعه را نشان میدهد. آزمون تحلیل واریانس تفاوت معنیداری بین گروهها نشان داد. نتایج ناشی از آزمون تعقیبی توکی کاهش معنیداری بین MIT نسبت به کلیه گروههای CO، FA و MIT.ESنشان داد (39F= و
0001/0P=)، اما در مقایسه با گروه ES معنیداری از خود نشان نداد 29/0F= و 999/0P=). همچنین تمرین استقامتی و تلفیقی از آن با تحریک الکتریکی منجر به کاهش معنیداری این ژن نسبت به گروههای CO (27F= و 0001/0P=) و افزایش معنیدار نسبت به ES و MIT شد (31F= و 0001/0P=). در نهایت گروه MIT با ES و MIT.ES با FA تغییرات معنیداری از خود نشان ندادند (1/1F= و 847/0P=).
جدول 3: توصیف و مقایسه متغیر FOXO1 در گروههای تحقیق
*نشانه تفاوت معنیدار بین گروه CO: کنترل بدون روزه و FA: چاق-روزهدار با سایر گروهها؛ MIT: فعالیت استقامتی روزهدار؛ ES: تحریک الکتریکی روزهدار ؛ MIT.ES: فعالیت استقامتی-تحریک الکتریکی روزهدار؛
از آنالیز واریانس (آنووآ) دوطرفه و آزمون تعقیبی توکی در سطح معنیداری 05/0 p ≤ استفاده شد.
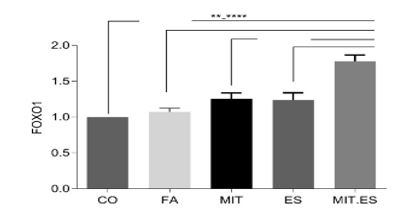
نمودار 1: مقایسه بین گروههای چاق شرکت کننده در تحقیق
*نشانه تفاوت معنیدار بین گروه CO: کنترل بدون روزه و FA: چاق-روزهدار با سایر گروهها؛ MIT: فعالیت استقامتی روزهدار؛ ES: تحریک الکتریکی روزهدار ؛ MIT.ES: فعالیت استقامتی-تحریک الکتریکی روزهدار؛
از آنالیز واریانس (آنووآ) دوطرفه و آزمون تعقیبی توکی در سطح معنیداری 05/0 p ≤ استفاده شد.
جدول 4: توصیف و مقایسه متغیر STRA13 در گروههای تحقیق
*نشانه تفاوت معنیدار بین گروه CO: کنترل بدون روزه و FA: چاق-روزهدار با سایر گروهها؛ MIT: فعالیت استقامتی روزهدار؛ ES: تحریک الکتریکی روزهدار ؛ MIT.ES: فعالیت استقامتی-تحریک الکتریکی روزهدار؛
از آنالیز واریانس (آنووآ) دوطرفه و آزمون تعقیبی توکی در سطح معنیداری 05/0 p ≤ استفاده شد.
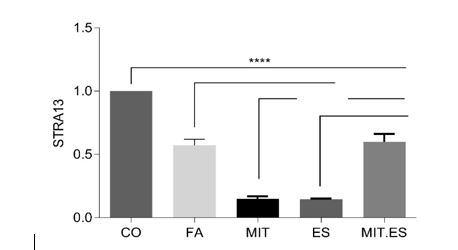
نمودار 2: مقایسه بین گروههای شرکت کننده در تحقیق
*نشانه تفاوت معنیدار بین گروه CO: کنترل بدون روزه و FA: چاق-روزهدار با سایر گروهها؛ MIT: فعالیت استقامتی روزهدار؛ ES: تحریک الکتریکی روزهدار ؛ MIT.ES: فعالیت استقامتی-تحریک الکتریکی روزهدار؛
از آنالیز واریانس (آنووآ) دوطرفه و آزمون تعقیبی توکی در سطح معنیداری 05/0 p ≤ استفاده شد.
بحث
هدف از پژوهش حاضر بررسی تاثیر یک دوره تمرین استقامتی بههمراه تحریک الکتریکی بر بیان ژنهای FOXO1 و STRA13 بافت چربی موشهای صحرایی چاق روزهدار بود. از یافتههای مهم این پژوهش میتوان به افزایش معنیدار بیان FOXO1 نسبت به گروه کنترل و روزهدار چاق اشاره نمود. شواهد علمی نشان میدهد بافت چربی یک اندام فعال ایمونولوژیک است که تأثیرات متعددی بر تنظیم متابولیسم و انرژی سیستمیک دارد. ایمنی بافت چربی توسط فعل و انفعالات بین سلول های چربی و سلولهای ایمنی مختلف تنظیم و تعدیل میشود. با این وجود، مکانیسمهای اساسی که تعاملات بین سلولی و سلول های چربی و سلول های ایمنی در بافت چربی به طور کامل مشخص نشده اند. اخیراً نشان داده شده است که سلولهای چربی از متابولیتهای لیپیدی بهعنوان یک واسطه کلیدی برای شروع و واسطهگری پاسخهای ایمنی در بافتهای چربی مختلف استفاده میکند. آنتیژنهای لیپیدی ادیپوسیتها و ترشح متابولیتهای لیپیدی از عوامل تعیین کننده شدت سیستم ایمنی می باشد. علاوه بر این، فعل و انفعالات بین سلولهای چربی و ایمنی چربی در کنترل سرنوشت چربی و عملکرد بر روی محرک های متابولیک درگیر است (34). تجمع چربی منجر به در ادیپوسیتها با ترشح CD1d منجر به فعالسازی آنتیژنهای لیپیدی خواهد شد و این آنتیژنها با اثرگذاری برگیرندههای سلول T (TCR-T-cell receptor) سلولهای کشنده (iNKT Invariant NKT Cells-) را فعال خواهد کرد. ترشح iNKT منجر به فعالیت فاکتورهای التهابی در اینترلوکین 2، 4، 10 و 13 میشود که این امر که این امر منجر منجر به فعالسازس فرایندهای پیش التهابی دیگری در ماکروفاژها، نوتروفیلها و CD8 بافت چربی افراد چاقی میشود. پس چاقی با روند فوق و ترشح عوامل التهابی مانند پروستاگلاندینها منجر به التهاب و بیماری خواهد شد (35). از اینرو انجام مداخلاتی که بتواند تاثیرات مثبتب بر فرایند لیپولیز بافت چربی داشته باشد برای پژوهشگران از اهمیت ویژهای برخوردار است. از روشهای رایج این فرایند فعالیتهای ورزشی از اولین توصیهها برای پیشگیری و بازتوانی این بیماران است. هم راستا با نتایج این پژوهش اسلاپک و همکاران در سال 2014 گزارش کردند متعاقب با یک جلسه تمرین استقامتی بیان ژن FOXO1 در عضلات اسکلتی موشهای صحرایی افزایش معنیداری نشان داد (15). همچنین آزاد و همکاران در سال 2021 نیز مشاهده کردند تمرین کوتاه دویدن روی تریدمیل با شیب منفی (دویدن در سراشیبی) به افزایش معنیدار FOXO1 منجر می شود (36). از طرفی نتایج تحقیق ساکی و همکاران در سال 2022 با تمرینات هیت بر بیان ژن فوق تاثیر معنیداری نشان نداد (37). در تضاد با نتایج این پژوهش سهیلی و همکاران در سال 2020 نشان داد که یک دوره تمرینات هوازی سبب کاهش بیان ژن FOXO1 میشود (16). همچنین رضایی و همکاران در سال 2021 در پژوهشی با هدف بررسی تأثیر 6 هفته تمرین تناوبی شدید بر بیان ژن FOXO1 در موشهای صحرایی دیابتی گزارش کردند که تمرین تناوبی شدید باعث کاهش معنیدار بیان ژن FOXO1 میشود (38) که با نتایج تحقیق اکبری و همکاران در سال 2020 در کاهش FOXO1 همسو بوده است (39). از دلایل تضاد مطالعات فوق با نتیجه این پژوهش میتوان به تفاوتهای مانند روزهداری و محدودیت کالری، شدت و مدت تمرین و چاق بودن نمونههای این پژوهش اشاره نمود. از دلایل افزایش FOXO1 میتوان گفت ژن فوق از طریق ممانعت سلولها از افزایش کلونسازی ژن 3T3-F422A توانسته است، از تمایز سلول پیش ساز چربی جلوگیری کند (40). از دیگر نتایج این پژوهش کاهش معنیداری بیان ژن STRA13 نسبت به گروه کنترل و چاق روزهدار بود. تا آنجا که نویسندگان مقاله حاضر بررسی کردهاند این اولین پژوهشی است که به بررسی تاثیر تمرینات ورزشی بر بیان ژن STRA13 موشهای صحرایی با محدودیت کالری و روزهدار پرداخته است، همچنین مطالعات ورزشی بر عملکرد این ژن بسیار اندک میباشد. در همین راستا نتایج تحقیق تشکری و همکاران در سال 2022 نشان داده شد تمرینات هوازی و تناوبی هر دو منجر به کاهش معنیدار مقادیر ژن STRA13 بافت چربی زیر پوستی موشهای صحرایی شد (17). تحقیقات نشان داده است، بیان STRA13 در بسیاری از پاسخهای بیولوژیکی از جمله توقف چرخه سلولی و تمایز و آپوپتوز نقش دارد. STRA13 از خانواده حلقه مارپیچ پایه (Basic Elix-Loop-Helix -bHLH) که یکی از مهارکنندههای فاکتورهای رونویسی، از جمله FOXO1 بوده و با فعالسازی آن چربیزایی با واسطه هیپوکسی مهار میشود (41). STRA13 میتواند از طریق عامل القا هایپوکسی (Hypoxia-Inducible Factor 1-alpha -HIF-1α) که قادر به جلوگیری از تمایز سلولهای چربی است، تنظیم میشود. در واقع، بهنظر میرسد STRA13 بهعنوان یک عامل HIF واسطه برای اثر هایپوکسی در تمایز عمل کند. از اینرو فشار اکسیژنی منجر به تمایز و تغییر در سیتوتروفوبلاست مگاکاریوسیتها، استئوکندروسیتها، سلولهای چربی و نورونها میشود (42). همچنین هایپوکسی از طریق مکانیسم سرکوب بیان گیرنده فعالشده تکثیرکننده پراکسیزوم گاما (PPARγ که بهطور خاص تنظیمکننده اصلی چربیزایی در نظر گرفته میشود و بدون آن، سلولهای پیشساز قادر به بیان هیچ جنبه شناخته شدهای از فنوتیپ چربی نمیباشند) تمایز ادیپوسیتها توسط STRA13 را مهار میکند. همچنین این ژن توسط رتینوئیک اسید (RA) القا میشود (43) و در نتیجه، یک عامل واسطهای بوده که توسط آن، RA باعث مهار چربیزایی شود. براساس نتایج پژوهش فوق انجام تمرینات هوازی در حین محدودیت کالری منجر به افزایش معنیداری ژن FOXO1 نسبت به گروه کنترل و محدودیت کالری شد. اما مقادیر ژن STRA13 کاهش معنیدار در حین رژیم غذایی روزهداری در مقایسه با گروه کنترل و محدودیت کالری از خود نشان داد. در همین راستا میایوچی و همکاران در سال 2019 نشان دادند یک محدیت غذایی منجر به تنظیم بالایی از مقادیر ژن FOXO1 میشود. FOXO1 بهطور معمول در بافتهای داری انسولین مانند کبد، بافت چربی و لوزالمعده بیان شده و دارای سه بخش فسفوریلاسیون بسیار محافظت شده T24، S253 و S316 میباشد که توسط AKT فسفریله میشود. فسفوریلاسیون FOXO1 در این بخشها توسط AKT مانع فعالسازی رونویسی با واسطه FOXO1 میشود و بهطور مشابه استیله شدن FOXO1 میل به اتصال DNA آن را ضعیف می کند و باعث انتقال آن از هسته به سیتوپلاسم میشود (42). بنابراین، استیله شدن آن میتواند اثر فسفوریلاسیون AKT را برای مهار بیشتر فعال سازی رونویسی توسط FOXO1 تقویت کند. با توجه به این شرایط، به خوبی تصور میشود که FOXO1 در تنظیم چرخه سلولی در مسیر تمایز چربیها نقش موثری به ویژه در محدودیت کالری دارد (8). از دیگر نتایج تحقیق فوق افزایش معنیدار بیان ژن FOXO1 و کاهش معنیدار ژن STRA13 در موشهای صحرایی چاق با مداخله ES نسبت بعد نسبت به گروههای کنترل و چاق روزهدار بود. همچنین تلفیقی از ES و تمرین ورزشی منجر به افزایش معنیدار FOXO1 و کاهش معنیدار STRA13 نسبت به گروه کنترل شد. مطالعهای در خصوص ES و ژنهای فوق مشاهده نشد. اما در تحقیقی از ابل و همکاران در سال 2006 نشان داده شد تحریک الکتریکی سیستم گوارشی تاثیر معنیداری در بافت چربی دارد (24). همچنین چن و همکاران در سال 2018 گزارش کردند ES با افزایش قهوهای شدن WAT میتواند همراه با یک رژیم غذایی کمچرب برای افزایش کاهش وزن در کنار سرکوب اشتها مورد استفاده قرار گیرد (43). لی و همکاران در سال2020 نیز در پژوهش خود تنظیم بالایی از ترموژنزی بافت BAT را نشان دادند و بیان کردند تحریک عصبی الکتریکی منجر به افزایش موضعی گرما توسط BAT شده بدون آنکه تأثیری بر دمای هسته سلولی داشته باشد (44). این روش درمانی منجر به افزایش تولید محتوای تیروزین هیدروکسیلاز (TH) در پایانههای عصبی شده و بهدنبال آن افزایش فعالیت سمپاتیکی را بههمراه خواهد داشت. همچنین در این مکانیزم افزایش فسفوریلاسیون لیپاز حساس به هورمون (HSL) همزمان با کاهش لیپیدهای داخل سلولی در بافت BAT بدون اینکه بر جذب حاد مواد مغذی از پلاسما تأثیر بگذارد مشاهده شد (44). بهدلیل جدید بودن موضوع و تحقیقات مربوط به بازتوانی ورزشی بههمراه تحریک الکتریکی در شرایط روزهداری و بررسی اثرات متقابل آن با تحریکها و شدتهای متفاوت و بهویژه در غالب بیان ژن نیاز به تحقیقات بیشتری خواهد داشت و پیشنهای در این خصوص مشاهده نشد.
نتیجهگیری
بهنظر میرسد تمرین استقامتی، تحریک الکتریکی و تلفیق آن با تمرین در نمونهها با محدودیت کالری با کاهش و مهار مقادیر ژن STRA13 در نمونههای چاق توانسته است در فرایندهای ترموژنز با تبدیل بافت چربی سفید به قهوهای و در کنترل وزن موثر باشد. هر چند که در این خصوص نیاز به مطالعات بیشتری میباشد.
سپاسگزاری
این مقاله حاصل رساله نویسنده اول مقاله بوده و از همه افرادی که در این تحقیق مشارکت داشتند تشکر و قدردانی مینمایم.
حامی مالی
این تحقیق هیچگونه کمک مالی از سازما نهای تأمین مالی در بخشهای عمومی، تجاری یا غیرانتفاعی دریافت نکرد.
تعارض در منافع
وجود ندارد.
ملاحظات اخلاقی
این مطالعه با کد اخلاق IR.IAU.ARAK.REC.1403.101 توسط کمیته اخلاق پژوهشی دانشگاه آزاد اسلامی واحد اراک بهتصویب رسیده است.
اظهارنامه استفاده از فناوری هوش مصنوعی
از هیچ هوش مصنوعی در پژوهش فوق استفاده نشده است.
دسترسپذیری داده ها
در صورت درخواست دادههای خام این مطالعه، از طریق نویسنده مسئول ارائه خواهد شد.
مشارکت نویسندگان
این مطالعه برگرفته از رساله دکتری فیزیولوژی ورزشی در دانشگاه آزاد اسلامی واحد محلات است. آقای ابوالفضل آبایی هزاوه بهعنوان دانشجوی دکتری در طراحی و اجرای مطالعه، گردآوری دادهها و تدوین اولیه مقاله مشارکت داشته است. دکتر مهدی مرادی بهعنوان استاد راهنمای اول و دکتر محمد ملکیپویا بهعنوان استاد راهنمای دوم، در هدایت علمی پژوهش، نظارت برمراحل اجرای مطالعه و بازبینی محتوای علمی مقاله نقش داشته اند. همچنین دکتر بهرام عابدی استاد مشاور نامبرده در ارائه مشاوره تخصصی و اصلاحات علمی مقاله مشارکت داشته است.
Changes in the Expression of FOX01 and STRA13 Genes in Adipose Tissue of obese Rats Following Endurance Training and Electrical Stimulation with Calorie Restriction
Abolfazl Abaei Hazaveh1 , Mehdi Morady 2 , Mohammad Malekipooya 2 , Bahram Abedi3
1 Department of Exercise Physiology, Maha.C., Islamic Azad University, Mahallat, Iran
2 Department of Exercise Physiology, Ar.C., Islamic Azad University, Arak, Iran
3 Department of Exercise Physiology, NT.C., Islamic Azad University, Tehran, Iran
Abstract
Corresponding author: Department of Exercise Physiology, Ar.C., Islamic Azad University, Arak, Iran
Email: drmoradi59@iau.ac.ir
mo.malekipooya@iau.ac.ir
Tel: +989188601487
Postal Code:3836119131
Received: 29 Apr 2026
Revised: 30 Jun 2026
Accepted: 5 Aug 2026
How to Cite this Article:
Abaei Hazaveh A, Morady M, Malekipooya M, Abedi B. Changes in the Expression of FOX01 and STRA13 Genes in Adipose Tissue of Obese Rats Following Endurance Training and Electrical Stimulation with Calorie Restriction. J Shahid Sadoughi Uni Med Sci 2026; 34(7): 10473-487.
Introduction: Obesity represents an increasing disease and a cause of cardiovascular diseases, hypertension, hyperlipidemia, diabetes and cancer. Therefore, the aim of the present study was designed to investigate the changes in the expression of FOX01 and STRA13 genes within the adipose tissue of obese rats following endurance training and electrical stimulation with calorie restriction.
Methods: In this controlled experimental study, 35 male rats (8 weeks, weighing 200±19g) were randomly allocated into five equal cohorts of seven following the induction of obesity and weight gain: non-fasting, fasting alone, fasting with endurance exercise, fasting with electrical stimulation, and fasting combined with both endurance exercise and electrical stimulation. The groups were subjected to training (speed 10 to 20m/min and duration 20 to 40min), electrical stimulation (foot shock device 0.5mA and 20min) and fasting (8 to 16 hours) for four weeks. After exercise and anesthesia, adipose tissue was sampled and after performing molecular processes, gene expression was measured using PCR machine. Statistical evaluations were conducted using two-way analysis of variance at a significance level of p<0.05 with GraphPad software.
Results: The results showed that endurance training, as well as its combination with electrical stimulation, led to an increase in FOX01 and a significant decrease in STRA13 expression in rats compared to the control group (P=0.0001 and P=0.001, respectively). Furthermore, electrical stimulation alone also induced a significant increase and decrease in FOX01 and STRA13 genes (P=0.0001).
Conclusion: That seems that endurance training in fasted obese samples has had positive effects on fasted obese samples by reducing STRA13 and converting white adipose tissue into brown tissue.
Keywords: Obesity, Fasting, Endurance Training, Electrical Stimulation, FOX01, STRA13.
This work is licensed under a Creative Commons Attribution 4.0 Unported License which allows users to read, copy, distribute and make derivative works for non-commercial purposes from the material, as long as the author of the original work is cited properly.
Extended Abstract
Introduction
Obesity is a growing disease and a contributing factor to cardiovascular disease, hypertension, hyperlipidemia, diabetes, and cancer. (1). Obesity is defined as the excessive growth of adipose tissue resulting from an increase in the number and size of adipocytes. The human body comprises different types of adipocytes—classified as white, brown, and beige (brown-like) adipose tissue—which participate in vital processes such as metabolism, fat storage, and thermogenesis. In this context, the FOXO1 and STRA13 genes are directly linked to energy metabolism and play a significant role in both brown and white adipose tissue (3, 11). Consequently, engaging in aerobic exercise is among the primary recommendations for the prevention and rehabilitation of these patients. Furthermore, Islamic teachings advocate for fasting and caloric restriction to promote health and manage weight, particularly for overweight and obese individuals. Fasting regimens have recently gained attention and are being utilized for weight loss (18). Finally, electrical stimulation—distinct from physical activity and fasting—is recognized as another modality for weight loss and was employed in the present study (24).
Methods
This experimental study utilized 35 eight-week-old Wistar rats (weighing 200±19g), which were kept in the laboratory for two weeks under controlled conditions of 22±2°C, 12 hours of light and 12 hours of darkness, and 50±5 humidity prior to the intervention. Following this period, the rats were randomly divided into five groups of 7 animals including a moderate intensity aerobic exercise group (MIT), an electrical stimulation group (ES), an aerobic exercise-electrical stimulation group (MIT.ES), a calorie-restricted control group (FA; fasting), and a control group without calorie restriction (CO). The groups (excluding the control groups) participated in an intervention protocol for four weeks. The animals were placed on a high-calorie diet for approximately eight weeks and became obese. From the beginning of the training program, the groups were fasted from 6:00 AM to 6:00 PM [29]. Peanuts, milk chocolate and sweet biscuits were used in the ratio of 3:2:2:1 to fatten the animals [28]. The aerobic exercise protocol was of moderate intensity for 4 weeks with a speed of 20-29 m/min in the second week 20 m/min, in the third week 25 m/min, in the fourth week 27/min and in the fifth week 29/min, 5 days a week, for 60 minutes with an intensity of 55-60% Vo2max and a zero-degree slope according to Table 1 [29]. The electrical stimulation protocol (ES) was applied using a stimulator connected to the foot shock device with 0.5 mA. For four weeks, 5 sessions per week, 20 minutes of electrical stimulation were performed per session [32, 33]. At the end of the intervention, all rats were anesthetized 24 hours after the final exercise and electrical stimulation session. Subsequently, samples of leg adipose tissue were analyzed to evaluate gene expression.
Results
Descriptive and analytical statistics regarding FOXO1 levels following MIT and ES interventions are presented in Table 3. Figure 1 illustrates the relative expression levels of the FOXO1 gene across the study groups. Analysis of variance (ANOVA) revealed significant differences between the groups. Tukey’s post-hoc test indicated a significant increase in the MIT group compared to the FA and CO groups (F=2.7, P=0.001). Furthermore, endurance training (MIT) and its combination with electrical stimulation (ES) resulted in a significant upregulation of this gene compared to all other study groups (F=21, P=0.0001). The ES group showed a significant increase compared to the FA group (F=5.3, P=0.006) and a significant decrease compared to the MIT+ES group (F=18, P=0.0001); however, no significant difference was observed between the ES group and the MIT or CO groups (F=4.3, P=0.521).
Descriptive and analytical statistics regarding STRA13 levels following MIT and ES interventions are presented in Table 4. Figure 2 illustrates the expression levels of the STRA13 gene across the study groups. ANOVA revealed significant differences between the groups. Tukey’s post-hoc test indicated a significant decrease in the MIT group compared to the CO, FA, and MIT+ES groups (F=39, P=0.0001), but no significant difference was observed when compared to the ES group (F=0.29, P=0.999). Furthermore, endurance training—and its combination with electrical stimulation—resulted in a significant decrease in the expression of this gene compared to the control (CO) group (F=27, P=0.0001) and a significant increase compared to the ES and MIT groups (F=31, P=0.0001). Finally, no significant differences were observed between the MIT and ES groups, nor between the MIT+ES and FA groups (F=1.1, P=0.847).
Conclusion
It appears that endurance training, electrical stimulation, and their combination—in conjunction with caloric restriction—have proven effective in thermogenesis (via the conversion of white adipose tissue to brown adipose tissue) and weight control in obese subjects, by reducing and suppressing STRA13 gene expression; however, further studies are required in this regard.
مقاله پژوهشی
تغییرات بیان ژن FOX01 و STRA13 بافت چربی موشهای صحرایی چاق متعاقب تمرین استقامتی و تحریک الکتریکی با محدودیت کالری
ابوالفضل آبایی هزاوه 1 ، مهدی مرادی 2 ، محمد ملکی پویا 2 ، بهرام عابدی 3
1 گروه فیزیولوژی ورزشی، واحد محلات، دانشگاه آزاد اسلامی، محلات، ایران
2 گروه فیزیولوژی ورزشی، واحد اراک، دانشگاه آزاد اسلامی، اراک، ایران
3 گروه فیزیولوژی ورزش، واحد تهران شمال، دانشگاه آزاد اسلامی، تهران، ایران
چکیده
نویسنده مسئول
مهدی مرادی و محمد ملکی پویا، گروه فیزیولوژی ورزشی، واحد اراک، دانشگاه آزاد اسلامی، اراک، ایران
پست الکترونیک:
drmoradi59@iau.ac.ir
mo.malekipooya@iau.ac.ir
تلفن: 09183636948
صندوق پستی: 3836119131
تاریخ دریافت: 9/2/1405
تاریخ بازنگری: 9/4/1405
تاریخ پذیرش: 14/5/1405
ارجاع:
آبایی هزاوه ابوالفضل، مرادی مهدی، ملکیپویا محمد، عابدی بهرام. تغییرات بیان ژن FOX01 و STRA13 بافت چربی موشهای صحرایی چاق متعاقب تمرین استقامتی و تحریک الکتریکی با محدودیت کالری. مجله علمی پژوهشی دانشگاه علوم پزشکی شهید صدوقی یزد. 1405؛ 34 (7): 487-10473.
مقدمه: چاقی یک بیماری فزاینده و عامل بیماریهای قلبیعروقی، پرفشاری خونی، چربی خون، دیابت و سرطان است. لذا هدف از پژوهش حاضر بررسی تغییرات بیان ژنها FOX01 و STRA13 بافت چربی موشهای صحرایی چاق متعاقب تمرین استقامتی و تحریک الکتریکی با محدودیت کالری بود.
روش بررسی: در این مطالعۀ تجربی کنترل شده با گروه شاهد 35 سر موش صحرایی نر ویستار (8 هفتهای با وزن 19±200 گرم) پس از القاء چاقی و افزایش وزن بهطور تصادفی به 5 گروه 7تایی بدون محدودیت کالری، محدودیت کالری، محدودیت کالری-تمریناستقامتی، محدودیت کالری-تحریکالکتریکی و محدودیت کالری-تمریناستقامتی-تحریکالکتریکی تقسیم شدند. گروههای برای چهار هفتهای تحت تمرین استقامتی (سرعت 10 تا 20 متر/دقیقه و مدت 20 تا 40 دقیقه)، تحریکالکتریکی (دستگاه فوت شوک 5/0 میلی آمپر و 20 دقیقه) و محدودیت کالریی (8 به 16 ساعت) قرار گرفتند. پس از تمرین و بیهوشی، نمونهبردای بافت چربی صورت گرفت و پس از انجام فرایندهای ملکولی بیان ژنها با استفاده از دستگاه PCR اندازهگیری شد. برای آنالیز دادهها از آزمون تحلیل واریانس دوطرفه در سطح معنیداری 05/0>p و نرمافزار گرافپد استفاده شد.
نتایج: نتایج نشان داد تمرین استقامتی و تلفیق آن با تحرک الکتریکی منجر به افزایش معنیدار FOX01 (0001/0=(P و کاهش معنیدار ) STRA13 001/0=P) موشهای صحرایی نسبت به گروه کنترل شد. همچنین تحریک الکتریکی منجر به افزایش (0001/0=P) و کاهش معنیدار (0001/0=P) ژنهای FOX01 و TRA13 گردید.
نتیجهگیری: بهنظر میرسد تمرین استقامتی در نمونههای چاق محدودیت کالری با کاهش STRA13 و تبدیل بافت چربی سفید به بافت قهوهای شود اثرات مثبتی بر نمونه های چاق روزه دار به همراه داشته است.
واژههای کلیدی: چاقی، محدودیت کالری، تمرین استقامتی، تحریک الکتریکی،FOX01 ، STRA13.
مقدمه
براساس تعریف سازمان بهداشت جهانی چاقی یک بیماری مزمن پیچیده است که با رسوب بیش از حد چربی تعریف شده سلامت جامعه را مختل و خطر ابتلا به دیابت نوع 2، بیماریهای قلبی، استخوانی، تولیدمثل و ابتلا به برخی از سرطانها را افزایش میدهد. براساس گزارش این سازمان، در سال 2022، از هر 8 نفر 1 فرد مبتلا به چاقی میباشد. این بیماری در سراسر جهان از سال ۱۹۹۰ بیش از دو برابر رشد داشته و 13 درصد جمعیت جهان را درگیر کرده که بسیار نگران کننده میباشد. همچنین در نوجوانان نیز چهار برابر افزایش داشته است. بیش از 390 میلیون کودک و نوجوان 5 تا 19 ساله در سال 2022 دارای اضافه وزن بودند، که 160میلیون نفر از آنها به چاقی دچار شدهاند (1). در ایران نیز چاقی و اضافه وزن تا سال ۲۰۱۵ نزدیک به ۱۱ و ۱۸ میلیون نفر را تحتتأثیر قرار داده و در سال ۲۰۲۱ تقریباً ۲۱ درصد رشد بههمراه داشته است. چاقی از دلایل مستقیم و غیرمستقیم بیماریهای مزمن و مهمی مانند قلبیعروقی، فشار خون بالا، دیابت، سرطان، سندرم متابولیک، کلیه، سکته مغزی، استئوآرتریت، آپنه، افسردگی، اضطراب غیره بوده و منجر به کاهش 10 سال از عمر انسان میگردد (2). چاقی بهعنوان رشد اضافی بافت چربی (Adipose Tissue -AT) در نتیجه افزایش تعداد و اندازه سلولهای ادیپوسیتها تعریف شده است. بدن انسان از انواع متفاوتی از ادیپوسیتها با نام بافت چربی سفید (WAT-White Adipose Tissue)، قهوهای (Brown Adipose Tissue -BAT) و شبه قهوهای (بژ یا برایت BLA) تشکیل شده و در فرآیندهای مهمی مانند متابولیسم، ذخیره چربی و گرمازایی مشارکت دارد (3). مطالعات ژنی متفاوتی در سالهای اخیر برای بررسی نقش ژنهای درگیر در پاتوفیزیولوژی چاقی انجام شده است. در میان این تحقیقات پروتئین جعبه سرچنگالی- O1(Forkhead Box Protein O1) که توسط ژن FOXO1کدگزاری میشود بهعنوان یکی از ﺧﺎﻧﻮاده ﻓﺎﮐﺘﻮرﻫﺎی رونویسی درگیر در متابولیسم انرژی معرفی شده و نقش مهمی در ﻫـﺮ دو ﺷـﮑﻞ ﭼﺮﺑـﯽ ﻗﻬـﻮهای و ﺳـﻔﯿﺪ ایﻔـﺎ ﻣﯽﮐﻨﺪ. هر چند FOXO1 یک تنظیم کننده مرکزی در چند نوع سلول از جمله سلولهای چربی بوده و به وفور یافت میشود، ولی عملکردهای بیولوژیکی آن در این سلولها تا حد زیادی ناشناخته مانده است (4). بیﻧﻈﻤـﯽ در ﺑﯿـﺎن ژن FOXO1 ﺑﻪ ﺑﺴﯿﺎری از ﺷﺮایﻂ ﻣﺘﺎﺑﻮﻟﯿﮏ، ﺑـﻪویـﮋه ﭼـﺎﻗﯽ ﻣﻨﺠـﺮ شده و تأثیر مهمی بر فیزیولوژی و پاتولوژی اختلالات متابولیکی مانند چاقی دارند (5،6) بهطور طبیعی این ژن در بافتها و اندامهای حساس به انسولین مانند چربی، کبد، پانکراس و عضلات اسکلتی بیان شده (5،7) و بسیاری از مسیرهای متابولیکی مهم در این اندامها را تنظیم میکند (8)FOXO1 . به میزان بالایی در آدیپوسیتها بیان شده و بر فعالیتهای متابولیکی بافت چربی از جمله لیپوژنز اثر گذار است (7). بهطورکلی میتوان گفت FOXO1 بهعنوان یک عامل ضد چاقی شناخته شده است که در بهبود متابولیسم چربی، حفظ هموستاز ردوکس و در نتیجه مقابله با پاتولوژیهای همچون چاقی و دیابت نوع 2 نقش اساسی ایفا میکند (8). از طرفی اختلال عملکرد مسیرهای FOXO1به بروز بیماریهای متابولیکی از جمله چاقی، دیابت، بیماری کبد چرب غیر الکلی و آترواسکلروز منجر میشود (5). در افراد چاق یا دیابتی بیان ژن وابسته به FOXO1 برخی ویژگیهای زیانآور مرتبط با چاقی و دیابت، از جمله هیپرگلیسمی و عدم تحمل گلوکز را افزایش میدهد (9). از طرفی با توجه به یافتههای پژوهشی موجود بهنظر میرسد کاهش بیان ژن FOXO1 میتواند به بهبود فرآیندهای متابولیکی مرتبط با چاقی و اضافه وزن منجر شود. در این زمینه گزارش شده است که در موشهای صحرایی چاق شده با رژیم غذایی پر چرب، کاهش بیان FOXO1 با مقاومت انسولین مرتبط با چاقی مقابله میکند (10). ژن محرک رتینوئیک اسید-13 (STRA13- Stimulated with Retinoic Acid 13) یک ﻣﻬﺎرﮐﻨﻨﺪ اﺳﺖ و ﮔﺴﺘﺮش ﺑﺎﻓﺖ ﭼﺮﺑـﯽ در ﺑـﺪن را ﮐﺎﻫﺶ ﻣﯽدﻫﺪ (11). اﮔﺮﭼﻪ ﺑﺎﻓﺖﭼﺮﺑﯽ ﻣﻮﺟﺐ ﺗﺮﺷﺢ آدیﭙﻮﺳﺎیﺘﻮﮐﺎیﻦﻫﺎی ﭘیﺶ اﻟﺘــﻬﺎﺑﯽ؛ ﻧﻈﯿﺮ ایﻨﺘﺮﻟﻮﮐﯿﻦ-6، ﻓﺎﮐﺘﻮر ﻧﮑﺮوز دﻫﻨﺪه ﺗﻮﻣﻮر-آﻟﻔﺎ و ﻟﭙﺘﯿﻦ ﻣـﯽﺷـﻮد اﻣﺎ ایـﻦ ﻣﺎﮐﺮوﻓﺎژﻫـﺎی ﻣﺴـﺘﻘﺮ در ﺑﺎﻓـﺖ ﭼﺮﺑـﯽ ﻫﺴﺘﻨﺪ ﮐﻪ ﻣﻨﺒﻊ اوﻟﯿﻪ ﺳﺎیﺘﻮﮐﺎیﻦﻫﺎی اﻟﺘﻬـﺎﺑﯽ در ﭼـﺎﻗﯽ ﺑﻪﺣﺴﺎب ﻣﯽآیﻨﺪ (12). STRA13 یـﮏ ﻓﺎﮐﺘﻮر روﻧﻮیﺴﯽ bHLH اﺳﺖ ﮐﻪ در ﺗﻌﺪادی از اﻧﻮاع ﺳﻠﻮلﻫﺎ ﺑﯿﺎن ﻣﯽﺷﻮد. ﺑﯿﺎن ایﻦ ژن ﺗﻮﺳﻂ ﭼﻨﺪیﻦ ﻣﺤﺮک در اﻧﻮاع ﺳﻠﻮلﻫﺎی ﻣﺨﺘﻠﻒ اﻟﻘﺎ ﻣـﯽﺷـﻮد و ﺑـﺎ اﻓﺰایﺶ ﻓﻌﺎﻟﯿﺖ در ﺳﻠﻮلﻫﺎ، در ﺗﻨﻈـﯿﻢ ﺗﻤـﺎیﺰ ﺳـﻠﻮﻟﯽ، ﺗﻐﯿﯿﺮ ﭼﺮﺧﻪ ﺳﻠﻮﻟﯽ، ﭘﺎﺳﺦ ﺑﻪ اﺳﺘﺮس و آﭘﻮﭘﺘـﻮز ﻧﻘـﺶ ﻣﻮﺛﺮی دارد (6). ﺑﻪﻧﻈﺮ ﻣﯽرﺳـﺪ، ﺑﺮﻧﺎﻣـﻪﻫـﺎی ﺗﻤﺮیﻨــﯽ ﺑــﺎ ﮐــﺎﻫﺶ ﺗﻌــﺪاد ﺳــﻠﻮلﻫــﺎی ﭼﺮﺑــﯽ، ﺑﻬﺒــﻮد ﻋﻤﻠﮑﺮد ﺗﺮﺷﺤﯽ ﺳﻠﻮلﻫﺎی ﭼـﺮب و ﮐـﺎﻫﺶ ﻣﺤﺘـﻮای ﻣﺎﮐﺮوﻓﺎژﻫــﺎی ﺑﺎﻓــﺖﭼﺮﺑــﯽ، در ﺗﻌــﺪیﻞ ﺳــﻄﻮح آدیﭙﻮﮐــﺎیﻦﻫــﺎی ﺗﺮﺷــﺢ ﺷــﺪه از ﺑﺎﻓــﺖﭼﺮﺑــﯽ ﻧﻘــﺶ ﺑﻪﺳـﺰایﯽ داﺷـﺘﻪ ﺑﺎﺷـﺪ (13). ﻓﻌﺎﻟﯿـﺖ ورزﺷـﯽ ﺗﺒـﺪیﻞ ﺑﺎﻓﺖﭼﺮﺑﯽ ﺳﻔﯿﺪ ﺑﻪ ﭼﺮﺑـﯽ ﻗﻬـﻮهای ﮐـﻪ دو ﭘـﺮوﺗﺌﯿﻦ PRDM16 و PPAR-γ در ایــﻦ اﻣــﺮ ﻧﻘــﺶ ﻣﻬﻤــﯽ دارﻧﺪ را ﺗﺴﻬﯿﻞ ﻣﯽﮐﻨﺪ. ایﻦ ﺳﺎزﮔﺎریﻫﺎی ﻧﺎﺷـﯽ از ﺗﻤﺮیﻨﺎت ورزﺷﯽ ﺑﺎﻋﺚ اﻓﺰایﺶ ﻟﯿﭙﻮﻟﯿﺰ ﺑﺎﻓﺖ ﭼﺮﺑـﯽ ﻣﯽﺷﻮد (14). از اینرو انجام فعالیتهای ورزشی هوازی (MIT- Moderate Intensity Training) از اولین توصیهها برای پیشگیری و بازتوانی این بیماران است. اسلاپک و همکاران در سال 2014 در پژوهش خود گزارش کردند متعاقب با یک جلسه تمرین استقامتی در عضله اسکلتی موش های صحرایی بیان ژن FOXO1 ئافزایش معنیدار نشان داد (15). از طرفی نتایج مطالعه سهیلی و همکاران در سال 2020 نشان داد که یک دوره تمرینات هوازی سبب کاهش بیان ژن FOXO1 شد (16). در پژوهش از تشکری و همکاران در سال 2022 نشان داده شد تمرینات متفاوت ورزشی منجر به کاهش معنیدار مقادیر ژن STRA13 بافت چربی زیر پوستی موش های صحرایی شد (17). از دیگر روشهای که در دین اسلام برای سلامتی و محدودیت در کالری، بهویژه افراد دارای اضافه وزن و چاق توصیه شده روزهداری و محدودیت در کالری است. ماه مبارک رمضان را میتوان فرصتی مناسب برای جلوگیری از خطر افزایش وزن و کاهش چاقی در بین مردم مطرح کرد. در حال حاضر رژیم روزهداری مورد توجه قرار گرفته و در کاهش وزن از آن استفاده میشود (18). تاثیر روزهداری بر ترکیب بدنی، تغییرات هورمونی و عوامل التهابی و ریسک فاکتورهای قلبیعروقی در برخی از تحقیقات تایید شده است (19). در مطالعه فارسی و همکاران در سال 2012 نشان داده شده وزن، BMI و چربی بدن در هفته سوم ماه رمضان در مقایسه با یک هفته قبل یا بعد از روزهداری رمضان کاهش معنیداری داشته است (20). همچنین آنالیز و تجزیه و تحلیل متابولیسم لیپیدی قبل از ماه رمضان در مقایسه با مقادیر پس از ماه رمضان نشان داد، تریگلیسیرید در مردان، LDL در هر دو جنس کاهش و HDL در زنان افزایش یافت (21). در پژوهش میایوچی و همکارانش در سال 2019 گزارش شد محدودیت کالری موجب افزایش مقادیر ژن FOXO1 بویژه در برابر اسیبهای کبدی می شود (22). همچنین در تحقیق دیگری از یامازا و همکارانش در سال 2010 نشان داده شده محدودیت کالری می تواند با افزایش ژن FOXO1 می تواند اثرات ضد آنتی نئوپلاستیکی به همراه داشته باشد (23). لذا در پژوهش فوق بهعنوان یک مداخله در افراد چاق و دارای اضافه وزن بهعنوان یک مسئله مورد بررسی قرار گرفته است. همچنین استفاده از تحریک الکتریکی (ES- Electrical Stimulation) جدایی از فعالیت بدنی و روزهداری بهعنوان یک مدالیته دیگر در کاهش وزن مورد تایید است (24). در کنار تمرینات استقامتی ES موجب فراخوانی حداکثری واحدهای عضلانی و کاهش بافت چربی میشود (25). ایوانی و همکاران در سال 2013 نشان دادند ES منجر به افزایش ترموژنز بافتهای چربی BAT میگردد (26). همچنین تحقیقات همیدا و همکاران در سال 2011 نیز نشان داده شد ES موجب القای لیپولیز سلولهای چربی میگردد (27). با توجه به مطالعات انجام شده انتظار میرود ES در کنار فعالیت بدنی یک مداخله جدیدی برای توانبخشی بیماران چاق باشد. پژوهشگران، تحقیقی که در آن به بررسی ژنها FOX01 و STRA13 با فعالیتهای بدنی، روزهداری (Fasting-FA) و تحریکالکتریکی در نمونههای چاق در بافت چربی احشایی باشد مشاهده نکردند. بحث فاکتورهای موثر بر فرآیند لیپولیز و میانجیها و چگونگی تاثیرپذیری آن به فعالیتهای ورزشی، روزهداری و تحریکالکتریکی کاملاً جدید است و مطالعهای در این زمینه صورت نگرفته و نظریۀ واحدی نیز در این خصوص وجود ندارد. ﺑﺎ ﺗﻮﺟﻪ ﺑﻪ ﭘﯿﺸﯿﻨﻪ و ﻧﺘﺎیﺞ متفاوت پژوهشی، ایﻦ ﮐﻪ ﺗﻤﺮیﻨﺎت ﻫﻮازی متعاقب متغیرهای مستقل تحقیقی ﻣﯽﺗﻮاﻧﻨﺪ با تاثیرگزاری بر ادیپوسیتها منجر به چربیسوزی شود به مطالعه بیشتری نیاز است. ﻟﺬا ﺑﻪدﻟﯿﻞ در دﺳـﺖ ﻧﺒﻮدن مطالعهای در ارتباط با مسئله فوق، ﻣﺤﻘﻖ ﺑﻪدﻧﺒﺎل ﭘﺎﺳﺨﮕﻮیﯽ ﺑﻪ این مسئله است که آیا تغییرات بیان ژنهای FOX01 و STRA13 بافت چربی موشهای صحرایی چاق متعاقب تمرین استقامتی و تحریک الکتریکی با محدودیت کالری معنیدار است.
روش بررسی
در این پژوهش پسآزمون با گروه کنترل، با استفاده از نرم افزار جی پاور از 35 سر موش صحرایی نر نژاد ویستار هشت هفتهای با میانگین وزنی 19±200 گرم که از دانشگاه بقیهاله ایران خریداری شده بود استفاده گردید. این حیوانات در قفسهای پلیکربنات شفاف و در شرایط کنترل شده با دمای 2±22 درجه سانتیگراد، رطوبت 5±50 درصد و چرخۀ روشنایی-تاریکی 12:12 ساعت با دسترسی کنترل شده با آب و غذای ویژه موشهای صحرایی نگهداری شدند. پس از انتقال حیوانات به محیط پژوهش به مدت یک هفته جهت سازگاری با محیط آزمایشگاه بدون مداخلهای در شرایط جدید نگهداری شدند. در ادامه پرتکل القا چاقی شروع شد و سپس موشهای صحرایی چاق شده بهطور تصادفی به پنج گروه چاق هفتتایی، 1-بدون محدودیت کالری (CO-Control)، 2- با محدودیت کالری (FA)، 3- محدودیت کالری-تمرین استقامتی (MIT)، 4- محدودیت کالری-تحریک الکتریکی (ES) و 5- محدودیت کالری تمرین استقامتی+ تحرک الکتریکی (MIT.ES) تقسیم شدند. برای افزایش وزن حیوانات از رژیم غذایی استاندارد با برنامه غذایی پرچرب موشهای صحرایی که از بادام زمینی، شکلات شیری و بیسکویتهای شیرین بهنسبت 3:2:2:1 تشکیل شده بود استفاده شد. این رژیم حاوی 20 گرم پروتئین، 20 گرم چربی، 48 گرم کربوهیدرات، چهار گرم فیبر بوده که در هر 100 گرم رژیم غذایی مخلوط و سپس آسیاب و در اختیار آنها قرار گرفت تا بر حسب شاخص لی وزن موشهای صحرایی در محدود 310 گرم قرار گیرد (28). پس از القا چاقی کلیه گروههای پژوهشی (بهجز کنترل) تحت برنامه محدودیت غذایی (هشت ساعت محدودیت -16 ساعت بدون محدویت کالری) (29) و با غذای استاندارد (23 گرم پروتئین، 49 گرم کربوهیدرات، چهار گرم چربی و پنج گرم فیبر در هر 100 گرم) قرار گرفتند. همچنین آب مورد نیاز هر حیوان بهصورت آزاد و در بطریهای 500 میلیلیتری ویژه حیوانات آزمایشگاهی در ساعات غیر روزهداری با رعایت دیگر پرتکلها در اختیار حیوانات قرار گرفت (30). مرحلۀ آشناسازی موشهای صحرایی با تردمیل در هفتۀ دوم، به مدت یک هفته، هفتهای پنج روز، هر روز به مدت 10 دقیقه و با سرعت 10 متر/دقیقه انجام شد. این میزان تمرین در حدی نیست که منجر به تغییرات بارزی در ظرفیت هوازی نمونههای تحقیقی شود. برای دویدن موشهای صحرایی از طریق صدا و تحریک شرطیسازی استفاده شد تا از نزدیک شدن، استراحت و برخورد با بخش شوک الکتریکی در بخش انتهای دستگاه خودداری کنند. پس از سازگاری، القا چاقی و آشناسازی با تردمیل، ابتدای به مدت پنج دقیقه، با سرعت ۱۰ متر/دقیقه و با شیب صفر درجه عمل گرم کردن انجام شد. تمرین استقامتی روی نوارگردان برای چهار هفته، هر هفته پنج جلسه، هر جلسه به مدت 60 دقیقه، با سرعت 20 تا 29 متر/ دقیقه و شدت بین 54 تا 65 درصد حداکثر اکسیژن مصرفی انجام شد (جدول 1). سرد کردن هم همانند گرم کردن بعد از پایان تمرین انجام شد (31). برای ایجاد ES در این پژوهش از دستگاه استیمولیتور R12 ساخت شرکت پرتو دانش استفاده شد. میزان شدت جریان الکتریسیته در این برنامه 5/0 میلیآمپر، به مدت 20 دقیقه و 3 روز در هفته در نظرگرفته شد. جریان از طریق خروجیهای استیمولیتور به دستگاه فوت شوک (Footshock) ارسال گردید. برنامه ES بعد از تمرین استقامتی و در داخل جعبه فوت شوک انجام شد (32،33). گروهها دو روز پس از پایان پروتکل تمرین و تحریک با ترکیبی از کتامین (75 میلیگرم/کیلوگرم) و زایلازین (10 میلیگرم/کیلوگرم) به روش درون صفاقی بیهوش و کشته شدند. در کلیه مراحل مختلف پژوهش ضمن رعایت مسائل اخلاقی سعی شد از هر گونه آزار جسمی و روشهای غیر ضروری اجتناب شود. سپس نمونه بافت چربی احشایی موشهای صحرایی برداشته و ﺑﺎ اﺳﺘﻔﺎده از ﻣﺤﻠﻮل بافر فسفات سالین (PBS) ﺷﺴﺘﺸﻮ شد و بلافاصله بعد از آن در ازت مایع منجمد گردید. این بافت تا زمان استخراج RNA به فریزر با دمای منفی80 درجۀ سانتیگراد انتقال داده شد. برای شروع ارزیابی ملکولی ابتدا بافتهای چربی از فریزر خارج و کوبیده شد. به پودر ناشی از بافت هموژن 700 میکرولیتر بافر محلول (LR) و 5/3 میکرولیتر محلول بتامرکاپتواتانول (β-ME مرک آلمان) اضافه و نمونهها برای یک دقیقه ورتکس شدند. در ادامه به نمونهها 200 میکرولیتر کلروفرم (TCM مرک آلمان) اضافه گردید و 30 ثانیه ورتکس مجدد انجام شد. سپس میکروتیوبهای حاوی ترکیبات فوق برای 3 دقیقه در دمای اتاق انکوبه و در سانتریفوژ (ﺳﯿﮕﻤﺎ آﻣﺮیکا) برای10 دقیقه با 11 هزار دور/ دقیقه قرارداده شد. در ادامه 400 میکرولیتر از فاز رویی محلول به یک میکروتیوب جدید انتقال داده و با 400 میکرولیتر اتانول مطلق (EA مرک آلمان) میکس گردید و مجدد سانتریفوژ انجام شد. پس از خروج محلول داخلی کلکتور، عمل واشینگ برای دو بار تکرار گردید و سانتریفوژ شد. ستون استخراج شده به یک میکروتیوب جدید انتقال و با محلول 50 میکرولیتر ایلوشن بافر (BS سیگما الدریچ آلمان) ترکیب گردید. محلول حاصل سانتریفوژ شده و سپس RNA استخراج و در یخچال برای مراحل دیگر نگهداری شد. ﻣﻄﺎﺑﻖ ﭘﺮوﺗﮑﻞ ﺷﺮﮐﺖ ﺳﺎزﻧﺪ (Fermentas, K1622, USA) بهازای استخراج هر RNA یک میکروتیوب جدید در نظر گرفته شد. بر حسب میکروتیوبهای حاوی RNA معادل یک نانوگرم ترکیب بافر 10 میکرولیتر و دو میکرولیتر آنزیم اضافه گردید تا حجم نهایی با افزودن آب دپس (DW) به 20 میکرولیتر افزایش یابد. سپس میکروتیوبهای حاوی ترکیبات فوق به مدت زمان 10 دقیقه در 25 درجه سانتیگراد،60 دقیقه در 47 درجه سانتیگراد و در نهایت پنج دقیقه در 85 درجه سانتیگراد انکوبه شد. در انتها نمونهها با استفاده از دستگاه نانودراپ (سونی مدل 2048) از نظر کمی و کیفی بررسی و همچنین کیفیت DNA نمونهها نیز بر روی ژل الکتروفورز لود و مورد بررسی قرار گرفت. واکنش زنجیره پلیمراز PCR با استفاده از دستگاه لایو تکنولوژی آمریکا و مواد اولیه شرکت کیاژن در آزمایشگاه دانشگاه ... انجام گردید. در همین راستا مقدار 5/6 میکرولیتر آب دپس، 10 میکرولیتر مسترمیکس، 5/0 میکرولیتر روکس، دو میکرولیتر پرایمر پیشرو و معکوس با یک میکرولیتر cDNA ترکیب گردید تا یک محلول 20 میکرولیتری تشکیل گردد. این ترکیب در دستگاه ریلتایم با دما و سیکلهای متفاوت مورد تجزیه و تحلیل قرار گرفت. توالی پرایمرها نیز از پایگاه دادههای مرکز ملی اطلاعات بیوتکنولوژی (NCBI) تهیه و سپس طراحی پرایمرهای هر دو ژن با استفاده از برنامۀ پرایمر مورد بررسی قرار گرفت که، در (جدول 2) آمده است.
جدول 1: برنامه تمرین استقامتی
| ردیف | هفته اول | هفته دوم | هفته سوم | هفته چهارم | هفته پنجم |
| مرحله اول | آشناسازی | ||||
| سرعت (متر/دقیقه) | 10 | 20 | 25 | 27 | 29 |
| مدت (دقیقه) | 10 | 60 | |||
| روز | 5 | 5 | |||
| شدت | - | 65-55 درصد vo2max (بر حسب سرعت حرکت تردمیل) | |||
| شیب | 0 | 0 | |||
جدول 2: پرایمرهای بهکار رفته در PCR
| نام ژن | توالی پرایمرها | |
| FOXO1 | پیشرو | GTCAGGCTAGGAGTTAGTG |
| معکوس | AAACTAAAAGGAGGGGTGAA | |
| STRA13 | پیشرو | ACTAGAGTCAGCAGGGAT |
| معکوس | ACATCTAGGTCCTCTGCT | |
| HKG (Housekeeping Gene) | باز 16 | CCCAAGCCGCATTTTT |
| باز 18 | TCCGCTTTTTCTTGTCAT | |
بیان کمی نتایج ژنهای FOXO1 و STRA13 با روش 2^(-ΔΔCt) انجام شد و همچنین توزیع نرمال آن با آزمون شاپیرو-ویلک تحت بررسی قرار گرفت. برای مقایسه میانگین بین گروهها، از آنالیز واریانس (آنووآ) دوطرفه و آزمون تعقیبی توکی استفاده شد. تجزیهوتحلیلهای آماری با استفاده از نرمافزار آماری گرافپد (نسخه 8) در سطح معنی¬داری (05/0p<) و سطح اطمینان 95% انجام شد.
نتایج
آمار توصیفی و تحلیلی سطوح FOXO1 با توجه به مداخلۀ MIT و ES در (جدول 3) ارائه شده است. همچنین (شکل 1) مقدار نسبی بیان ژن FOXO1 در گروههای مورد مطالعه را نشان میدهد. آزمون تحلیل واریانس تفاوت معنیداری بین گروهها نشان داد. نتایج ناشی از آزمون تعقیبی توکی افزایش معنیداری بین MIT نسبت به گروههای FA و CO نشان داد (7/2F= و 001/0P=). همچنین تمرین استقامتی و تلفیقی از آن با تحریک الکتریکی منجر به افزایش معنیداری این ژن نسبت به کلیه گروههای تحقیقی شد (21F= و 0001/0P=). همچنین گروه ES نسبت به FA افزایش معنیدار (3/5F= و 006/0P=) و نسبت به MIT.ES کاهش معنیداری از خود نشان داد (18F= و 0001/0P=). اما ES با گروه MIT و CO این تفاوت معنیدار نبود (3/4F= و 521/0P=). آمار توصیفی و تحلیلی سطوح STRA13 با توجه به مداخلۀ MIT و ES در جدول 4 ارائه شده است. همچنین (شکل 2) مقدار بیان ژن STRA13 در گروههای مورد مطالعه را نشان میدهد. آزمون تحلیل واریانس تفاوت معنیداری بین گروهها نشان داد. نتایج ناشی از آزمون تعقیبی توکی کاهش معنیداری بین MIT نسبت به کلیه گروههای CO، FA و MIT.ESنشان داد (39F= و
0001/0P=)، اما در مقایسه با گروه ES معنیداری از خود نشان نداد 29/0F= و 999/0P=). همچنین تمرین استقامتی و تلفیقی از آن با تحریک الکتریکی منجر به کاهش معنیداری این ژن نسبت به گروههای CO (27F= و 0001/0P=) و افزایش معنیدار نسبت به ES و MIT شد (31F= و 0001/0P=). در نهایت گروه MIT با ES و MIT.ES با FA تغییرات معنیداری از خود نشان ندادند (1/1F= و 847/0P=).
جدول 3: توصیف و مقایسه متغیر FOXO1 در گروههای تحقیق
| مقدار P |
مقدار F | مقدار DF | مقدار SE | میانگین | گروهها |
| ****0001/0 | 17 | 13 | 04/0 | 5178/1 | MIT با MIT.ES |
| 987/0 | 68/0 | 13 | 04/0 | 2460/1 | MIT با ES |
| **002/0 | 1/6 | 13 | 04/0 | 1647/1 | MIT با FA |
| ****0001/0 | 4/8 | 13 | 04/0 | 1282/1 | MIT با CO |
| ****0001/0 | 18 | 13 | 04/0 | 5073/1 | MIT.ES با ES |
| ****0001/0 | 23 | 13 | 04/0 | 4260/1 | MIT.ES با FA |
| ****0001/0 | 26 | 13 | 04/0 | 3895/1 | MIT.ES با CO |
| **006/0 | 3/5 | 13 | 04/0 | 1542/1 | ES با FA |
| 053/0 | 7/7 | 13 | 04/0 | 1177/1 | ES با CO |
| 450/0 | 4/2 | 13 | 04/0 | 0365/1 | FA با CO |
*نشانه تفاوت معنیدار بین گروه CO: کنترل بدون روزه و FA: چاق-روزهدار با سایر گروهها؛ MIT: فعالیت استقامتی روزهدار؛ ES: تحریک الکتریکی روزهدار ؛ MIT.ES: فعالیت استقامتی-تحریک الکتریکی روزهدار؛
از آنالیز واریانس (آنووآ) دوطرفه و آزمون تعقیبی توکی در سطح معنیداری 05/0 p ≤ استفاده شد.
نمودار 1: مقایسه بین گروههای چاق شرکت کننده در تحقیق
*نشانه تفاوت معنیدار بین گروه CO: کنترل بدون روزه و FA: چاق-روزهدار با سایر گروهها؛ MIT: فعالیت استقامتی روزهدار؛ ES: تحریک الکتریکی روزهدار ؛ MIT.ES: فعالیت استقامتی-تحریک الکتریکی روزهدار؛
از آنالیز واریانس (آنووآ) دوطرفه و آزمون تعقیبی توکی در سطح معنیداری 05/0 p ≤ استفاده شد.
جدول 4: توصیف و مقایسه متغیر STRA13 در گروههای تحقیق
| مقدار P |
مقدار F |
مقدار DF | مقدار SE | میانگین | گروهها |
| ****0001/0 | 31 | 13 | 02/0 | 1985/1 | MIT با MIT.ES |
| 999/0 | 29/0 | 13 | 02/0 | 1870/1 | MIT با ES |
| ****0001/0 | 29 | 13 | 02/0 | 9649/0 | MIT با FA |
| ****0001/0 | 58 | 13 | 02/0 | 2507/1 | MIT با CO |
| ****0001/0 | 31 | 13 | 02/0 | 9665/0 | MIT.ES با ES |
| 695/0 | 8/1 | 13 | 02/0 | 7454/0 | MIT.ES با FA |
| ****0001/0 | 27 | 13 | 02/0 | 0312/1 | MIT.ES با CO |
| ****0001/0 | 29 | 13 | 02/0 | 6504/0 | ES با FA |
| ****0001/0 | 58 | 13 | 02/0 | 9363/0 | ES با CO |
| ****0001/0 | 29 | 13 | 02/0 | 7142/0 | FA با CO |
*نشانه تفاوت معنیدار بین گروه CO: کنترل بدون روزه و FA: چاق-روزهدار با سایر گروهها؛ MIT: فعالیت استقامتی روزهدار؛ ES: تحریک الکتریکی روزهدار ؛ MIT.ES: فعالیت استقامتی-تحریک الکتریکی روزهدار؛
از آنالیز واریانس (آنووآ) دوطرفه و آزمون تعقیبی توکی در سطح معنیداری 05/0 p ≤ استفاده شد.
نمودار 2: مقایسه بین گروههای شرکت کننده در تحقیق
*نشانه تفاوت معنیدار بین گروه CO: کنترل بدون روزه و FA: چاق-روزهدار با سایر گروهها؛ MIT: فعالیت استقامتی روزهدار؛ ES: تحریک الکتریکی روزهدار ؛ MIT.ES: فعالیت استقامتی-تحریک الکتریکی روزهدار؛
از آنالیز واریانس (آنووآ) دوطرفه و آزمون تعقیبی توکی در سطح معنیداری 05/0 p ≤ استفاده شد.
بحث
هدف از پژوهش حاضر بررسی تاثیر یک دوره تمرین استقامتی بههمراه تحریک الکتریکی بر بیان ژنهای FOXO1 و STRA13 بافت چربی موشهای صحرایی چاق روزهدار بود. از یافتههای مهم این پژوهش میتوان به افزایش معنیدار بیان FOXO1 نسبت به گروه کنترل و روزهدار چاق اشاره نمود. شواهد علمی نشان میدهد بافت چربی یک اندام فعال ایمونولوژیک است که تأثیرات متعددی بر تنظیم متابولیسم و انرژی سیستمیک دارد. ایمنی بافت چربی توسط فعل و انفعالات بین سلول های چربی و سلولهای ایمنی مختلف تنظیم و تعدیل میشود. با این وجود، مکانیسمهای اساسی که تعاملات بین سلولی و سلول های چربی و سلول های ایمنی در بافت چربی به طور کامل مشخص نشده اند. اخیراً نشان داده شده است که سلولهای چربی از متابولیتهای لیپیدی بهعنوان یک واسطه کلیدی برای شروع و واسطهگری پاسخهای ایمنی در بافتهای چربی مختلف استفاده میکند. آنتیژنهای لیپیدی ادیپوسیتها و ترشح متابولیتهای لیپیدی از عوامل تعیین کننده شدت سیستم ایمنی می باشد. علاوه بر این، فعل و انفعالات بین سلولهای چربی و ایمنی چربی در کنترل سرنوشت چربی و عملکرد بر روی محرک های متابولیک درگیر است (34). تجمع چربی منجر به در ادیپوسیتها با ترشح CD1d منجر به فعالسازی آنتیژنهای لیپیدی خواهد شد و این آنتیژنها با اثرگذاری برگیرندههای سلول T (TCR-T-cell receptor) سلولهای کشنده (iNKT Invariant NKT Cells-) را فعال خواهد کرد. ترشح iNKT منجر به فعالیت فاکتورهای التهابی در اینترلوکین 2، 4، 10 و 13 میشود که این امر که این امر منجر منجر به فعالسازس فرایندهای پیش التهابی دیگری در ماکروفاژها، نوتروفیلها و CD8 بافت چربی افراد چاقی میشود. پس چاقی با روند فوق و ترشح عوامل التهابی مانند پروستاگلاندینها منجر به التهاب و بیماری خواهد شد (35). از اینرو انجام مداخلاتی که بتواند تاثیرات مثبتب بر فرایند لیپولیز بافت چربی داشته باشد برای پژوهشگران از اهمیت ویژهای برخوردار است. از روشهای رایج این فرایند فعالیتهای ورزشی از اولین توصیهها برای پیشگیری و بازتوانی این بیماران است. هم راستا با نتایج این پژوهش اسلاپک و همکاران در سال 2014 گزارش کردند متعاقب با یک جلسه تمرین استقامتی بیان ژن FOXO1 در عضلات اسکلتی موشهای صحرایی افزایش معنیداری نشان داد (15). همچنین آزاد و همکاران در سال 2021 نیز مشاهده کردند تمرین کوتاه دویدن روی تریدمیل با شیب منفی (دویدن در سراشیبی) به افزایش معنیدار FOXO1 منجر می شود (36). از طرفی نتایج تحقیق ساکی و همکاران در سال 2022 با تمرینات هیت بر بیان ژن فوق تاثیر معنیداری نشان نداد (37). در تضاد با نتایج این پژوهش سهیلی و همکاران در سال 2020 نشان داد که یک دوره تمرینات هوازی سبب کاهش بیان ژن FOXO1 میشود (16). همچنین رضایی و همکاران در سال 2021 در پژوهشی با هدف بررسی تأثیر 6 هفته تمرین تناوبی شدید بر بیان ژن FOXO1 در موشهای صحرایی دیابتی گزارش کردند که تمرین تناوبی شدید باعث کاهش معنیدار بیان ژن FOXO1 میشود (38) که با نتایج تحقیق اکبری و همکاران در سال 2020 در کاهش FOXO1 همسو بوده است (39). از دلایل تضاد مطالعات فوق با نتیجه این پژوهش میتوان به تفاوتهای مانند روزهداری و محدودیت کالری، شدت و مدت تمرین و چاق بودن نمونههای این پژوهش اشاره نمود. از دلایل افزایش FOXO1 میتوان گفت ژن فوق از طریق ممانعت سلولها از افزایش کلونسازی ژن 3T3-F422A توانسته است، از تمایز سلول پیش ساز چربی جلوگیری کند (40). از دیگر نتایج این پژوهش کاهش معنیداری بیان ژن STRA13 نسبت به گروه کنترل و چاق روزهدار بود. تا آنجا که نویسندگان مقاله حاضر بررسی کردهاند این اولین پژوهشی است که به بررسی تاثیر تمرینات ورزشی بر بیان ژن STRA13 موشهای صحرایی با محدودیت کالری و روزهدار پرداخته است، همچنین مطالعات ورزشی بر عملکرد این ژن بسیار اندک میباشد. در همین راستا نتایج تحقیق تشکری و همکاران در سال 2022 نشان داده شد تمرینات هوازی و تناوبی هر دو منجر به کاهش معنیدار مقادیر ژن STRA13 بافت چربی زیر پوستی موشهای صحرایی شد (17). تحقیقات نشان داده است، بیان STRA13 در بسیاری از پاسخهای بیولوژیکی از جمله توقف چرخه سلولی و تمایز و آپوپتوز نقش دارد. STRA13 از خانواده حلقه مارپیچ پایه (Basic Elix-Loop-Helix -bHLH) که یکی از مهارکنندههای فاکتورهای رونویسی، از جمله FOXO1 بوده و با فعالسازی آن چربیزایی با واسطه هیپوکسی مهار میشود (41). STRA13 میتواند از طریق عامل القا هایپوکسی (Hypoxia-Inducible Factor 1-alpha -HIF-1α) که قادر به جلوگیری از تمایز سلولهای چربی است، تنظیم میشود. در واقع، بهنظر میرسد STRA13 بهعنوان یک عامل HIF واسطه برای اثر هایپوکسی در تمایز عمل کند. از اینرو فشار اکسیژنی منجر به تمایز و تغییر در سیتوتروفوبلاست مگاکاریوسیتها، استئوکندروسیتها، سلولهای چربی و نورونها میشود (42). همچنین هایپوکسی از طریق مکانیسم سرکوب بیان گیرنده فعالشده تکثیرکننده پراکسیزوم گاما (PPARγ که بهطور خاص تنظیمکننده اصلی چربیزایی در نظر گرفته میشود و بدون آن، سلولهای پیشساز قادر به بیان هیچ جنبه شناخته شدهای از فنوتیپ چربی نمیباشند) تمایز ادیپوسیتها توسط STRA13 را مهار میکند. همچنین این ژن توسط رتینوئیک اسید (RA) القا میشود (43) و در نتیجه، یک عامل واسطهای بوده که توسط آن، RA باعث مهار چربیزایی شود. براساس نتایج پژوهش فوق انجام تمرینات هوازی در حین محدودیت کالری منجر به افزایش معنیداری ژن FOXO1 نسبت به گروه کنترل و محدودیت کالری شد. اما مقادیر ژن STRA13 کاهش معنیدار در حین رژیم غذایی روزهداری در مقایسه با گروه کنترل و محدودیت کالری از خود نشان داد. در همین راستا میایوچی و همکاران در سال 2019 نشان دادند یک محدیت غذایی منجر به تنظیم بالایی از مقادیر ژن FOXO1 میشود. FOXO1 بهطور معمول در بافتهای داری انسولین مانند کبد، بافت چربی و لوزالمعده بیان شده و دارای سه بخش فسفوریلاسیون بسیار محافظت شده T24، S253 و S316 میباشد که توسط AKT فسفریله میشود. فسفوریلاسیون FOXO1 در این بخشها توسط AKT مانع فعالسازی رونویسی با واسطه FOXO1 میشود و بهطور مشابه استیله شدن FOXO1 میل به اتصال DNA آن را ضعیف می کند و باعث انتقال آن از هسته به سیتوپلاسم میشود (42). بنابراین، استیله شدن آن میتواند اثر فسفوریلاسیون AKT را برای مهار بیشتر فعال سازی رونویسی توسط FOXO1 تقویت کند. با توجه به این شرایط، به خوبی تصور میشود که FOXO1 در تنظیم چرخه سلولی در مسیر تمایز چربیها نقش موثری به ویژه در محدودیت کالری دارد (8). از دیگر نتایج تحقیق فوق افزایش معنیدار بیان ژن FOXO1 و کاهش معنیدار ژن STRA13 در موشهای صحرایی چاق با مداخله ES نسبت بعد نسبت به گروههای کنترل و چاق روزهدار بود. همچنین تلفیقی از ES و تمرین ورزشی منجر به افزایش معنیدار FOXO1 و کاهش معنیدار STRA13 نسبت به گروه کنترل شد. مطالعهای در خصوص ES و ژنهای فوق مشاهده نشد. اما در تحقیقی از ابل و همکاران در سال 2006 نشان داده شد تحریک الکتریکی سیستم گوارشی تاثیر معنیداری در بافت چربی دارد (24). همچنین چن و همکاران در سال 2018 گزارش کردند ES با افزایش قهوهای شدن WAT میتواند همراه با یک رژیم غذایی کمچرب برای افزایش کاهش وزن در کنار سرکوب اشتها مورد استفاده قرار گیرد (43). لی و همکاران در سال2020 نیز در پژوهش خود تنظیم بالایی از ترموژنزی بافت BAT را نشان دادند و بیان کردند تحریک عصبی الکتریکی منجر به افزایش موضعی گرما توسط BAT شده بدون آنکه تأثیری بر دمای هسته سلولی داشته باشد (44). این روش درمانی منجر به افزایش تولید محتوای تیروزین هیدروکسیلاز (TH) در پایانههای عصبی شده و بهدنبال آن افزایش فعالیت سمپاتیکی را بههمراه خواهد داشت. همچنین در این مکانیزم افزایش فسفوریلاسیون لیپاز حساس به هورمون (HSL) همزمان با کاهش لیپیدهای داخل سلولی در بافت BAT بدون اینکه بر جذب حاد مواد مغذی از پلاسما تأثیر بگذارد مشاهده شد (44). بهدلیل جدید بودن موضوع و تحقیقات مربوط به بازتوانی ورزشی بههمراه تحریک الکتریکی در شرایط روزهداری و بررسی اثرات متقابل آن با تحریکها و شدتهای متفاوت و بهویژه در غالب بیان ژن نیاز به تحقیقات بیشتری خواهد داشت و پیشنهای در این خصوص مشاهده نشد.
نتیجهگیری
بهنظر میرسد تمرین استقامتی، تحریک الکتریکی و تلفیق آن با تمرین در نمونهها با محدودیت کالری با کاهش و مهار مقادیر ژن STRA13 در نمونههای چاق توانسته است در فرایندهای ترموژنز با تبدیل بافت چربی سفید به قهوهای و در کنترل وزن موثر باشد. هر چند که در این خصوص نیاز به مطالعات بیشتری میباشد.
سپاسگزاری
این مقاله حاصل رساله نویسنده اول مقاله بوده و از همه افرادی که در این تحقیق مشارکت داشتند تشکر و قدردانی مینمایم.
حامی مالی
این تحقیق هیچگونه کمک مالی از سازما نهای تأمین مالی در بخشهای عمومی، تجاری یا غیرانتفاعی دریافت نکرد.
تعارض در منافع
وجود ندارد.
ملاحظات اخلاقی
این مطالعه با کد اخلاق IR.IAU.ARAK.REC.1403.101 توسط کمیته اخلاق پژوهشی دانشگاه آزاد اسلامی واحد اراک بهتصویب رسیده است.
اظهارنامه استفاده از فناوری هوش مصنوعی
از هیچ هوش مصنوعی در پژوهش فوق استفاده نشده است.
دسترسپذیری داده ها
در صورت درخواست دادههای خام این مطالعه، از طریق نویسنده مسئول ارائه خواهد شد.
مشارکت نویسندگان
این مطالعه برگرفته از رساله دکتری فیزیولوژی ورزشی در دانشگاه آزاد اسلامی واحد محلات است. آقای ابوالفضل آبایی هزاوه بهعنوان دانشجوی دکتری در طراحی و اجرای مطالعه، گردآوری دادهها و تدوین اولیه مقاله مشارکت داشته است. دکتر مهدی مرادی بهعنوان استاد راهنمای اول و دکتر محمد ملکیپویا بهعنوان استاد راهنمای دوم، در هدایت علمی پژوهش، نظارت برمراحل اجرای مطالعه و بازبینی محتوای علمی مقاله نقش داشته اند. همچنین دکتر بهرام عابدی استاد مشاور نامبرده در ارائه مشاوره تخصصی و اصلاحات علمی مقاله مشارکت داشته است.
References
1. World Health Organization (WHO). Key facts about obesity. https://www.who.int/news-room/fact-sheets/detail/obesity-and-overweight. 2024.
2. Fruh SM. Obesity: Risk factors, complications, and strategies for sustainable long‑term weight management. J Am Assoc Nurse Pract. 2017; 29(S3‑14).
3. Fruhbeck G, Becerril S, Sainz N, Garrastachu P, Garcia-Velloso MJ. BAT: a new target for human obesity? Trends Pharmacol Sci. 2009; 30(8): 387-96.
4. Takeuchi Y, Yahagi N, Aita Y, Mehrazad-Saber Z, Ho MH, Huyan Y, et al. FoxO-KLF pathway switches the flow of macronutrients under the control of insulin. iScience. 2021; 24(12): 103446.
5. Peng S, Li W, Hou N, Huang N. A Review of FOXO1-Regulated Metabolic Diseases and Related Drug Discoveries. Cells. 2020; 9(1): 184.
6. Behl T, Kumar K, Sehgal A, Singh S, Zengin G, Negrut N, et al. Exploring the Genetic Conception of Obesity via the Dual Role of FoxO. Int J Mol Sci. 2021; 22(6): 3179.
7. Chen J, Lu Y, Tian M, Huang Q. Molecular mechanisms of FOXO1 in adipocyte differentiation. J Mol Endocrinol. 2019; 62(3): R239-R5.
8. Ioannilli L, Ciccarone F, Ciriolo MR. Adipose Tissue and FOXO1: Bridging Physiology and Mechanisms. Cells. 2020; 9(4): 849.
9. Gross DN, van der Heide LP, Birnbaum MJ. The role of FoxO in the regulation of metabolism. Oncogene. 2008; 27(16): 2320-36.
10. Kim JJ, Li P, Huntley J, Chang JP, Arden KC, Olefsky JM. FOXO1 haploinsufficiency protects against high-fat diet-induced insulin resistance with enhanced peroxisome proliferator-activated receptor gamma activation in adipose tissue. Diabetes. 2009; 58(6): 1275-82.
11. Sumarwoto T, Suroto H, Mahyudin F, Utomo DN, Romaniyanto, Tinduh D, et al. Role of adipose mesenchymal stem cells and secretome in peripheral nerve regeneration. Ann Med Surg. 2021; 67: 102482.
12. Li Y, Yun K, Mu R. A review on the biology and properties of adipose tissue macrophages involved in adipose tissue physiological and pathophysiological processes. Lipids Health Dis. 2020; 19(1): 164.
13. Prashanth G, Vastrad B, Tengli A, Vastrad C, Kotturshetti I. Investigation of candidate genes and mechanisms underlying obesity associated type 2 diabetes mellitus using bioinformatics analysis and screening of small drug molecules. BMC Endocr Disord. 2021; 21(1): 80.
14. Thyfault JP, Bergouignan A. Exercise and metabolic health: beyond skeletal muscle. Diabetologia. 2020; 63(8): 1464-74.
15. Slopack D, Roudier E, Liu ST, Nwadozi E, Birot O, Haas TL. Forkhead BoxO transcription factors restrain exercise-induced angiogenesis. J Physiol. 2014; 592(18): 4069-82.
16. Sohaily S, Eizadi M, Tarmast D. Effect of resistance training on FOXO1 gene expression in subcutaneous fatty tissue in diabetic wistar rats. J Gorgan Univ Med Sci. 2020; 21(4): 53-9. [In Persian]
17. Tashakkori GM, Nourshahi M, Shariatzadeh JM, Ansari S. The Effects of Aerobic Training with Different Intensity on FOXO1 and STRA13 Genes Expression in Subcutaneous Fat Tissue of Male Wistar Rat. J Ardabil Univ Med Sci. 2022; 22(4): 4-29.
18. Welton S, Minty R, O'Driscoll T, Willms H, Poirier D, Madden S, et al. Intermittent fasting and weight loss: Systematic review. Can Fam Physician. 2020; 66(2): 117-25.
19. Mattson MP, Longo VD, Harvie M. Impact of intermittent fasting on health and disease processes. Ageing Res Rev. 2017; 39: 46-58.
20. Faris MA, Kacimi S, Al-Kurd RA, Fararjeh MA, Bustanji YK, Mohammad MK, et al. Intermittent fasting during Ramadan attenuates proinflammatory cytokines and immune cells in healthy subjects. Nutr Res. 2012; 32: 947-55.
21. Kul S, Savaş E, Öztürk ZA, Karadağ G. Does Ramadan fasting alter body weight and blood lipids and fasting blood glucose in a healthy population? A meta-analysis. J Relig Health. 2014; 53: 929-42.
22. Miyauchi T, Uchida Y, Kadono K, Hirao H, Kawasoe J, Watanabe T, et al. Up-regulation of FOXO1 and reduced inflammation by β-hydroxybutyric acid are essential diet restriction benefits against liver injury. Proc Natl Acad Sci U S A. 2019; 116(27): 13533-42.
23. Yamaza H, Komatsu T, Wakita S, Kijogi C, Park S, Hayashi H, et al. FOXO1 is involved in the antineoplastic effect of calorie restriction. Aging Cell. 2010; 9(3): 372-82.
24. Abell TL, Minocha A, Abidi N. Looking to the Future: Electrical Stimulation for Obesity. Am J Med Sci. 2006; 331(4): 226-32.
25. Greenway F, Zheng J. Electrical stimulation as treatment for obesity and diabetes. J Diabetes Sci Technol. 2007; 1(2): 251-9.
26. Iwami M, Alkayed F, Shiina T, Taira K, Shimizu Y. Activation of brown adipose tissue thermogenesis by electrical stimulation to the dorsal surface of the tissue in rats. Biomed Res. 2013; 34(4): 173-8.
27. Hamida ZH, Comtois AS, Portmann M, Boucher JP, Savard R. Effect of electrical stimulation on lipolysis of human white adipocytes. Appl Physiol Nutr Metab. 2011; 36(2): 271-5.
28. Duarte FO, Sene-Fiorese M, Manzoni MS, de Freitas LF, Cheik NC, Garcia de Oliveira Duarte AC, et al. Caloric restriction and refeeding promoted different metabolic effects in fat depots and impaired dyslipidemic profile in rats. Nutrition. 2008; 24(2): 177-86.
29. Paxton R. Intermittent Fasting For Weight Loss a Beginners: the Secrets of Weight Loss with Total Health and Food Freedom. Edition K, editor. 2019.
30. Guerra-Cantera S, Frago LM, Díaz F, Ros P, Jiménez-Hernaiz M, Freire-Regatillo A, et al. Short-Term Diet Induced Changes in the Central and Circulating IGF Systems Are Sex Specific. Front Endocrinol (Lausanne). 2020; 11: 513.
31. Kazeminasab F, Marandi M, Ghaedi K, Esfarjani F, Moshtaghian J. Effects of a 4-week aerobic exercise on lipid profile and expression of LXRα in rat liver. Cell J. 2017; 19(1): 45-9.
32. Malekipooya M. Response of acute incremental aerobic activity along with electrical stimulation on some markers of angiogenesis in Isoproterenol induced rats. EBNESINA. 2024; 26(1): 28-37.
33. Malekipooya M. The response of fibroblast-derived factor and endostatin to acute rehabilitation of physical activity along with electrical stimulation in infarcted rats. Med J Mashhad Univ Med Sci. 2024; 67: 4.
34. Park J, Shin J, Han SM, Park YJ, Huh JY, Choe SS, et al. Adipocytes Are the Control Tower That Manages Adipose Tissue Immunity by Regulating Lipid Metabolism. Front Immunol. 2021; 11: 598566.
35. Vijayakumar A, Aryal P, Wen J, Syed I, Vazirani RP, Moraes-Vieira PM, et al. Absence of Carbohydrate Response Element Binding Protein in Adipocytes Causes Systemic Insulin Resistance and Impairs Glucose Transport. Cell Rep. 2017; 21: 1021-35.
36. Azad M, Khaledi N, Hedayati M. Effect of acute and chronic eccentric exercise on FOXO1 mRNA expression as fiber type transition factor in rat skeletal muscles. Gene. 2016; 584(2): 180-4.
37. Saki M, Khaledi D, Samarikhalaj H. Changes in FOXO1 gene expression in subcutaneous adipose tissue and lipid profile following high intensity interval training in high fat diet-induced obese rats. Med J Mashhad Univ Med Sci. 2022; 65(4).
38. Rezaei S, Khaledi N. The effect of high intensity interval training on serum TNF-α levels and FOXO1 gene expression of hippocampus in male diabetic Wistar Rats. J Sabzevar Univ Med Sci. 2021; 28(5): 688-99. [In Persian]
39. Akbari E, Fathi B, Sadat B, Askari B. The effect of 6 week resistance training program on FOXO1 expression in liver cells and glucose and insulin levels in type 2 diabetic rats. J Ardabil Univ Med Sci. 2020; 20(3): 328-39. [In Persian]
40. Bedada FB, Nso N, Nwulia EO, Fungwe TV, Nadarajah SR, Obisesan TO. Exercise training-increased FBXO32 and FOXO1 in a gender-dependent manner in mild cognitively impaired African Americans: GEMS-1 Study. Front Aging Neurosci. 2021; 13: 641758.
41. Zhao Q, Feng Z, Qiu L, Che Q, Wang T, Li Y, et al. MdbHLH130, an apple bHLH transcription factor, confers water stress resistance by regulating stomatal closure and ROS homeostasis in transgenic Tobacco. Front Plant Sci. 2020; 11: 543696.
42. Yun Z, Maecker HL, Johnson RS, Giaccia AJ. Inhibition of PPARγ2 gene expression by the HIF-1-regulated gene DEC1/STRA13: a mechanism for regulation of adipogenesis by hypoxia. Dev Cell. 2002; 2(2): 331-41.
43. Chen SH, Chen HC, Hsieh CL, Chao PM. Electric stimulation of ears accelerates body weight loss mediated by high-fat to low-fat diet switch accompanied by increased white adipose tissue browning in C57BL/6J mice. BMC Complement Altern Med. 2018; 18(1): 323.
44. Li Z, de Jonge WJ, Wang Y, Rensen PCN, Kooijman S. Electrical Neurostimulation Promotes Brown Adipose Tissue Thermogenesis. Front Endocrinol (Lausanne). 2020; 11: 567545.
نوع مطالعه: پژوهشي |
موضوع مقاله:
فیزیولوژی ورزش
دریافت: 1405/2/9 | پذیرش: 1405/7/15 | انتشار: 1405/7/15
دریافت: 1405/2/9 | پذیرش: 1405/7/15 | انتشار: 1405/7/15
ارسال پیام به نویسنده مسئول
| بازنشر اطلاعات | |
 |
این مقاله تحت شرایط Creative Commons Attribution-NonCommercial 4.0 International License قابل بازنشر است. |