دوره 34، شماره 7 - ( مهر 1405 )
جلد 34 شماره 7 صفحات 10450-10438 |
برگشت به فهرست نسخه ها

Ethics code: IR.UT.SPORT.REC.1403.067


Download citation:
BibTeX | RIS | EndNote | Medlars | ProCite | Reference Manager | RefWorks
Send citation to:


BibTeX | RIS | EndNote | Medlars | ProCite | Reference Manager | RefWorks
Send citation to:
Samimi S, Kordi A H S K Q, Saffar Kohneh Quchan A H. Investigating the Effect of Eight Weeks of Moderate-Intensity Continuous Training on the Expression of GABA, GAD65, GAD67, and GAT3 Proteins in the Hippocampus of Rats with Epilepsy. JSSU 2026; 34 (7) :10438-10450
URL: http://jssu.ssu.ac.ir/article-1-6613-fa.html
URL: http://jssu.ssu.ac.ir/article-1-6613-fa.html
صمیمی سحر، کردی محمد رضا، صفارکهنه قوچان امیرحسین. بررسی تاثیر 8 هفته تمرینات تداومی با شدت متوسط بر بیان پروتئینهای GABA، GAD65، GAD67 و GAT3 در هیپوکمپ موشهای صحرایی مبتلا به صرع. مجله علمي پژوهشي دانشگاه علوم پزشكي شهید صدوقی يزد. 1405; 34 (7) :10438-10450


متن کامل [PDF 872 kb]
(23 دریافت)
| چکیده (HTML) (34 مشاهده)
Original Article
Investigating the Effect of Eight Weeks of Moderate-Intensity Continuous Training on the Expression of GABA, GAD65, GAD67, and GAT3 Proteins in the Hippocampus of Rats with Epilepsy
Sahar Samimi1 , Mohammad Reza Kordi2 , Amir Hossein Saffar Kohneh Quchan2
1 PhD student in Exercise Physiology, Kish International Campus, University of Tehran, Kish, Iran
2 Department of Exercise Physiology, Faculty of Sports Sciences and Health, University of Tehran, Tehran, Iran
Abstract
Corresponding author:
Department of Exercise Physiology, Faculty of Sports Sciences and Health, University of Tehran, Tehran, Iran
Email: mrkordi@ut.ac.ir
Tel: +982161118838
Postal Code: 9471863391
Received: 7 Jan 2026
Revised: 30 Jun 2026
Accepted: 5 Aug 2026
How to Cite this Article:
Samimi S, Kordi M.R, Saffar Kohneh Quchan A.H. Investigating the Effect of Eight Weeks of Moderate-Intensity Continuous Training on the Expression of GABA, GAD65, GAD67, and GAT3 Proteins in the Hippocampus of Rats with Epilepsy. J Shahid Sadoughi Uni Med Sci 2026; 34(7): 10438-450.
Introduction: The impairment of the GABAergic system plays an important role in increasing the excitability of hippocampal networks and the persistence of seizures in epilepsy. The present study aimed to investigate the effects of eight weeks of moderate-intensity continuous training (MICT) on the expression of GABA, GAD65, GAD67, and GAT3 proteins in the hippocampus of epileptic rats.
Methods: In this study, 32 male Wistar rats, aged 6–8 weeks, were randomly assigned to four groups: control, sham, epilepsy, and epilepsy+ MICT. Epilepsy was induced via intrahippocampal injection of kainic acid and confirmed using the Racine scale. The epilepsy+ MICT group performed an eight-week exercise intervention consisting of five sessions per week; each session lasted 45 minutes, with 40 minutes of running at 60% Vmax. Forty-eight hours after completion of the protocol, the hippocampus was extracted, and protein expression was measured using western blotting. Data analysis was performed using one-way ANOVA and Tukey's post hoc test at a significance level of 0.05 with SPSS software.
Results: Epilepsy induction significantly decreased the expression levels of GABA, GAD65, and GAD67 compared with the control group (P<0.0001). In the epilepsy+ MICT group, GAD67 expression significantly increased and differed significantly from that in the epilepsy group (P<0.0001), whereas the changes in GABA and GAD65 levels were not found to be statistically significant compared with the epilepsy group. Moreover, GAT3 expression was significantly higher in the epilepsy group than in the other groups, and the MICT intervention significantly reduced its expression (P<0.0001). Seizure severity was also significantly lower in the MICT group than in the epilepsy group.
Conclusion: Moderate-intensity continuous training may help reduce seizure severity in epileptic rats and partially attenuate hippocampal inhibitory-system dysfunction by increasing GAD67 and decreasing GAT3.
Keywords: Epilepsy, MICT, GABA، GAD، GAT3
This work is licensed under a Creative Commons Attribution 4.0 Unported License which allows users to read, copy, distribute and make derivative works for non-commercial purposes from the material, as long as the author of the original work is cited properly.
Extended Abstract
Introduction
One of the key mechanisms in the pathophysiology of epilepsy is an imbalance between excitation and inhibition of neural activity. This imbalance is associated with increased extracellular glutamate or decreased gamma-aminobutyric acid (GABA) concentration, leading to excitotoxicity, seizures, and cell death. GABA is synthesized from glutamate by the enzyme glutamic acid decarboxylase, whose two main isoforms, GAD65 and GAD67, play key roles in regulating GABA storage and synthesis. Additionally, GABA reuptake transporters, particularly GAT1 and GAT3, which are mainly expressed in glial cells, play a determining role in maintaining synaptic inhibition by regulating extracellular GABA concentration. In recent years, regular physical exercise has been proposed as a low-risk and accessible non-pharmacological intervention for the management of neurological disorders, including epilepsy. The aim of the present study was to investigate the effect of 8 weeks of moderate-intensity continuous training (MICT) on the protein expression of GABA, GAD65, GAD67, and GAT3 in the hippocampus of epileptic rats.
Methods
In this study, 32 male Wistar rats aged 6–8 weeks with a mean weight of 226.6 ± 14.9 g were obtained from the Pasteur Institute of Iran. The animals were randomly divided into four equal groups: 1) healthy control group: healthy rats that received no epilepsy induction or exercise intervention; 2) epilepsy group: rats in which epilepsy was induced by intrahippocampal injection of kainic acid; 3) sham group: rats that underwent all procedures of anesthesia, stereotaxic fixation, and needle insertion similar to the epilepsy group, but did not receive kainic acid; 4) epilepsy + MICT group: rats that performed the moderate-intensity continuous training protocol for 8 weeks after epilepsy induction. One week after acclimatization to the environment, the rats were anesthetized with intraperitoneal injection of 7% chloral hydrate. Epilepsy induction was performed by intrahippocampal injection of kainic acid (2.5 µg) under stereotaxic guidance. Seizure occurrence was evaluated using the Racine behavioral scale, and induction success was confirmed. Typically, the first seizures were observed between 30 and 40 minutes after injection. Seizure severity was recorded according to the five-stage Racine classification: 1) staring; 2) automatic facial movements; 3) forelimb clonus; 4) rearing and falling; 5) tonic–clonic seizures with running. The training program was performed for 8 weeks, five sessions per week, each session lasting 45 minutes, continuously at moderate intensity. Each session consisted of 5 minutes of warm-up and 40 minutes of running at 60% of maximum running speed (Vmax). Forty-eight hours after the end of the protocol, the hippocampus was extracted and protein expression was measured by Western blot. Data analysis was performed using one-way ANOVA and Tukey's post hoc test at a significance level of 0.05 with SPSS version 16 software.
Results
The results of the one-way ANOVA revealed a significant difference in GABA levels among the research groups (F(3,28) = 199.846, P < 0.0001). Tukey's post hoc test indicated significant differences between the epilepsy and control groups, as well as between the epilepsy and sham groups. However, no significant difference was observed between the epilepsy and epilepsy + MICT groups. Regarding GAD67, the one-way ANOVA demonstrated a significant difference among the research groups (F(3,28) = 75.786, P < 0.0001). Tukey's post hoc test revealed significant differences between the epilepsy and control groups, between the sham and epilepsy groups, and also between the epilepsy and epilepsy + MICT groups. For GAD65, the one-way ANOVA showed a significant difference among the research groups (F(3,28) = 126.271, P < 0.0001). Tukey's post hoc test revealed significant differences between the epilepsy and control groups and between the epilepsy and sham groups, but no significant difference between the epilepsy and epilepsy + MICT groups. Finally, for GAT3, the one-way ANOVA indicated a significant difference among the research groups (F(3,28) = 34.814, P < 0.0001). Tukey's post hoc test showed a significant difference between the epilepsy and control groups, with GAT3 levels in the epilepsy group being considerably higher than in all other groups. Additionally, significant differences were found between the epilepsy and epilepsy + MICT groups and between the epilepsy and sham groups, with GAT3 levels being lower in the epilepsy + MICT group. Overall, the results indicate that epilepsy induction produced significant alterations in key components of the GABAergic system, including GABA, GAD67, GAD65, and GAT3. Moreover, MICT appeared to exert differential effects on these markers, with significant changes observed in GAD67 and GAT3, but not in GABA and GAD65, in epileptic rats.
Conclusion
In conclusion, based on the findings of the present study, it can be inferred that epilepsy induction with kainic acid weakens key components of the inhibitory system in the hippocampus, including decreased GABA, GAD65, and GAD67, and increased levels of GAT3, a marker associated with GABA clearance. In contrast, MICT can partially modulate this impairment by increasing GAD67 and decreasing GAT3. Therefore, moderate-intensity continuous training may contribute to reducing epilepsy-related disorders, likely through the pathway of relative improvement in hippocampal GABAergic inhibitory capacity.
مقاله پژوهشی
بررسی تاثیر 8 هفته تمرینات تداومی با شدت متوسط بر بیان پروتئین¬های GABA، GAD65، GAD67 و GAT3 در هیپوکمپ موش¬های صحرایی مبتلا به صرع
سحر صمیمی 1 ، محمدرضا کردی 2 ، امیرحسین صفار کهنه قوچان2
1 دانشجوی دکترای تخصصی فیزیولوژی ورزشی، پردیس بین المللی کیش، دانشگاه تهران، کیش، ایران
2 گروه فیزیولوژی ورزشی، دانشکده علوم ورزشی و تندرستی، دانشگاه تهران، تهران، ایران
چکیده
نویسنده مسئول:
محمدرضا کردی
گروه فیزیولوژی ورزشی، دانشکده علوم ورزشی و تندرستی، دانشگاه تهران، تهران، ایران
پست الکترونیک: mrkordi@ut.ac.ir
تلفن: 02161118838
صندوق پستی: 9471863391
تاریخ دریافت: 17/10/1404
تاریخ بازنگری: 9/4/1405
تاریخ پذیرش: 14/5/1405
ارجاع:
صمیمی سحر، کردی محمدرضا، صفارکهنه قوچان امیرحسین. بررسی تاثیر 8 هفته تمرینات تداومی با شدت متوسط بر بیان پروتئین¬های GABA، GAD65، GAD67 و GAT3 در هیپوکمپ موشهای صحرایی مبتلا به صرع. مجله علمی پژوهشی دانشگاه علوم پزشکی شهید صدوقی یزد 1405؛ 34 (7): 450-10438.
مقدمه: اختلال در سیستم گاباآرژیک نقش مهمی در افزایش تحریکپذیری شبکههای هیپوکمپی و تداوم تشنج در بیماری صرع دارد. هدف پژوهش حاضر بررسی اثر ۸ هفته تمرین تداومی با شدت متوسط (MICT) بر بیان پروتئینهای GABA، GAD65، GAD67 و GAT3 در هیپوکمپ موشهای صحرایی مبتلا به صرع بود.
روش بررسی: در این مطالعه، ۳۲ سر موش صحرایی نر نژاد ویستار (8–6 هفته) بهصورت تصادفی در چهار گروه قرار گرفتند: کنترل، شم، صرع و صرع+MICT. بیماری صرع با تزریق درونهیپوکمپی کاینیکاسید القا و بر اساس مقیاس راسین تأیید شد. گروه صرع+MICT به مدت ۸ هفته، ۵ جلسه در هفته، هر جلسه ۴۵ دقیقه (۴۰ دقیقه دویدن با ۶۰%Vmax) تمرین کرد. ۴۸ ساعت پس از پایان پروتکل، هیپوکمپ استخراج و بیان پروتئینها با وسترنبلات اندازهگیری شد. تحلیل دادهها با ANOVA یکطرفه و آزمون تعقیبی توکی در سطح معناداری 05/0 با نرمافزار SPSS version 16 انجام شد.
نتایج: القای صرع موجب کاهش معنادار GABA،GAD65 و GAD67 نسبت به گروه کنترل شد (0.0001>P). در گروه صرع+MICT، GAD67 بهطور معنادار افزایش یافت و نسبت به گروه صرع تفاوت معنادار نشان داد (0001/0>P)، در حالیکه تغییرات GABA و GAD65 نسبت به گروه صرع معنادار نبود. همچنین GAT3 در گروه صرع بهطور معناداری بالاتر از سایر گروهها بود و تمرین MICT آن را بهطور معنادار کاهش داد (0001/0>P). شدت تشنجها در گروه MICT در مقایسه با گروه صرع بهطور معنادار کاهش یافت.
نتیجهگیری: تمرین تداومی با شدت متوسط میتواند در موشهای صحرایی مبتلا به صرع با کاهش شدت تشنجها همراه باشد و بخشی از اختلال سیستم مهاری هیپوکمپ را از طریق افزایش GAD67 و کاهش GAT3 تعدیل کند.
واژههای کلیدی: صرع، تمرین تداومی با شدت متوسط، GABA، GAD، GAT3
مقدمه
صرع یک اختلال مزمن عصبی است که با بروز دو یا چند تشنج بدون علت مشخص و با فاصله حداقل 24 ساعت تعریف میشود. این اختلال حدود 50 میلیون نفر را در سراسر جهان درگیر کرده است و سالانه موجب بیش از 125هزار مورد مرگ می¬شود (1). با وجود پیشرفت¬های قابل¬توجه در درمان¬دارویی، حدود یک سوم بیماران به دارو مقاوم هستند؛ به این معنا که تشنج¬ها با وجود مصرف حداقل دو داروی ضد صرع مناسب، کنترل نمی¬شوند (2). علاوه بر این کاربرد آنها در درمان تشنج به دلیل تعدادی از عوامل از جمله، ایجاد وابستگی، عوارض جانبی از جمله خواب¬آلودگی، سرگیجه، خستگی، اختلال میدان بینایی و بروز وضعیت صرعی غیرتشنجی محدود شده است (3). این موضوع توجه پژوهشگران را به سوی شناسایی عوامل مؤثر در بروز تشنج و توسعه مداخلات غیر دارویی از جمله فعالیت ورزشی جلب کرده است. برای طراحی چنین مداخلاتی، شناخت سازوکارهای زیستی مؤثر در ایجاد و تداوم تشنج، بهویژه مکانیسمهای مرتبط با تعادل تحریک و مهار نورونی، ضروری است. یکی از مکانیسمهای کلیدی در پاتوفیزیولوژی صرع، عدم تعادل بین تحریک و مهار فعالیت¬های عصبی است. این عدم تعادل با افزایش گلوتامات خارج سلولی یا کاهش غلظت گاماآمینوبوتیریک¬اسید gamma Aminobutyric acid (GABA) مرتبط است که منجر به سمیت تحریکی، تشنج و مرگ سلولی می¬شود (2). گلوتامات بهعنوان مهمترین انتقالدهنده عصبی تحریکی در مغز نقش اساسی در فرآیندهایی مانند یادگیری، حافظه، شناخت و احساسات دارد و اختلال در متابولیسم آن با تشنج مرتبط است (4). سیلورمن و همکاران در سال 2018 گزارش کردند که آنزیم GABA-T در کاتابولیسم GABA نقش دارد و مهار این آنزیم میتواند بهعنوان یکی از راهبردهای افزایش سطح GABA، تقویت مهار عصبی و کنترل تشنج در صرع مطرح شود (5). مطالعات نشان می¬دهند کاهش انتقال عصبی گاباارژیک در مدلهای حیوانی متعدد صرع اکتسابی و ژنتیکی مرتبط است. بهعنوان مثال، از بین رفتن نورون¬های رابط مهاری منجر به کاهش آزادسازی گابا، کاهش مهار سلولهای اصلی تحریکی و تسهیل تشنج و صرع می¬شود (6). GABA اثرات مهاری خود را عمدتاً از طریق گیرندههای GABA_A و GABA_B اعمال میکند و سطح آن در سیناپس از طریق فرآیندهایی مانند سنتز توسط آنزیم گلوتامات دکربوکسیلاز و برداشت مجدد بهوسیله ناقلهای GAT تنظیم میشود (7). گابا از گلوتامات توسط آنزیم گلوتامیک اسید دکربوکسیلاز تولید میشود که دو ایزوفرم اصلی آن یعنی GAD65 و GAD67 در تنظیم ذخیره و سنتز گابا نقش کلیدی دارند. مطالعات نشان دادهاند که تغییر در بیان این دو ایزوفرم میتواند میزان GABA موجود در نورونها را تحتتأثیر قرار داده و حساسیت شبکه نورونی به تشنج را افزایش دهند (2،8). همچنین، ناقل¬های برداشت مجدد GABA، به ویژه GAT1 و GAT3 که عمدتاً در سلول¬های گلیال بیان میشوند، با تنظیم غلظت خارج سلولی GABA، نقش تعیین کننده¬ای در حفظ مهار سیناپسی دارند (9). اختلال در فعالیت یا بیان این ناقل¬ها در مدل¬های صرع گزارش شده و با افزایش تحریک نورونی همراه است (10). مورتنسن و همکاران در سال 2025 در مطالعه خود نشان دادند که برای افزایش سیگنالدهی GABAergic، مهار GAT3 مزیت درمانی نسبت به GAT1 ارائه میدهد. مهار GAT3 نهتنها سطح GABA سیناپسی را افزایش میدهد، بلکه همزمان منجر به کاهش متابولیسم اکسیداتیو GABA آستروسیتی میشود (11). بر این اساس، مداخلاتی که بتوانند تعادل تحریک–مهار را به نفع تقویت مسیرهای گاباآرژیک تعدیل کنند، ممکن است در کاهش تحریکپذیری عصبی و کنترل تشنج مؤثر باشند. در سال¬های اخیر فعالیت ورزشی منظم بهعنوان یک مداخله غیردارویی کمخطر و در دسترس، برای مدیریت اختلالات عصبی، از جمله صرع مطرح شده است (12). شواهد علمی نشان میدهد که فعالیت بدنی میتواند از طریق بهبود جریان خون مغزی (13)، کاهش استرس اکسیداتیو (14) و تعدیل التهاب عصبی (15) نقش حفاظتی در برابر تشنج داشته باشد. بهویژه تمرینات ورزشی با شدت متوسط، کم استرس و ایمن، کاهش فراوانی و شدت تشنج¬ را در مدل¬های انسانی و حیوانی مبتلا به صرع نشان داده¬اند (17-15). از سوی دیگر، عوامل التهابی مانند IL-6، IL-1β و TNF-αکه در پاتوژنز صرع نقش دارند، عملکرد گیرنده GABAA را مختل کرده و مهار نورونی را کاهش می¬دهند (18). تمرین شدید می¬تواند منجر به افزایش عوامل التهابی شود در حالیکه تمرینات با شدت متوسط باعث کاهش پایدار پروفایلهای التهابی می¬شوند (17،19). مطالعات متعددی نشان داده است که فعالیت ورزشی هوازی، کاهشGAD و گابا ناشی از صرع را مهار کرده و تعادل مهاری/تحریک را برقرار میکند (18،20،21). با اینحال، هنوز مشخص نیست که تمرین تداومی با شدت متوسط تا چه اندازه میتواند اجزای مختلف مسیر گاباآرژیک را بهصورت همزمان در هیپوکمپ مبتلا به صرع تحتتأثیر قرار دهد. با وجود مطالعات انجامشده درباره اثرات ضدتشنجی فعالیت ورزشی، شواهد محدودی درباره اثر مستقیم تمرینات تداومی با شدت متوسط Moderate intensity continuous training (MICT) بر سیستم گاباارژیک در هیپوکمپ وجود دارد. بهویژه بررسی همزمان سطح GABA، GAT3 و آنزیم¬های GAD65، GAD67 در هیپوکمپ بیماران یا مدلهای حیوانی مبتلا به صرع محدود است. از سوی دیگر، نقش GAT3 بهعنوان یکی از تنظیمکنندههای مهم پاکسازی خارجسلولی GABA در پاسخ به تمرین ورزشی در مدلهای صرع هنوز بهخوبی روشن نیست. با توجه به آسیبپذیری بالای هیپوکمپ در برابر تشنج و نقش آن در تنظیم شبکههای نورونی، بررسی تغییرات مولکولی این ناحیه پس از مداخله ورزشی میتواند درک عمیقتری از مکانیسمهای حفاظتی ورزش ارائه دهد. بنابراین، پژوهش حاضر با هدف بررسی اثر ۸ هفته تمرینات MICT بر بیان پروتئین GABA، آنزیمهای GAD65 و GAD67 و همچنین ناقل GAT3 در هیپوکمپ موشهای صحرایی مبتلا به صرع طراحی شده است تا به روشن شدن نقش احتمالی ورزش در تعدیل مسیرهای مهاری عصبی و توسعه رویکردهای درمانی مکمل برای صرع کمک کند.
روش بررسی
حیوانات: در این پژوهش از ۳۲ سر موش صحرایی نر ویستار با سن ۶ تا ۸ هفته و وزن متوسط 9/14±6/226 گرم استفاده شد که از مؤسسه انستیتو پاستور ایران تهیه گردیدند. حیوانات بهصورت تصادفی در چهار گروه مساوی قرار گرفتند: ۱-گروه کنترل سالم: موش¬های سالم که هیچگونه القای صرع یا مداخله تمرینی دریافت نکردند؛ ۲-گروه صرع: موشهای که صرع در آنها با تزریق درونهیپوکمپی کاینیکاسید القا شد؛ ۳- گروه شم: موش¬های که تمام مراحل بیهوشی، تثبیت در دستگاه استریوتاکسیک و ورود سوزن را مشابه گروه صرع دریافت کردند، اما کاینیکاسید به آنها تزریق نشد؛ ۴- گروه صرع+MICT: موش¬های که پس از القای صرع، پروتکل تمرین تداومی با شدت متوسط را بهمدت ۸ هفته اجرا کردند. موش¬ها در شرایط محیطی کنترلشده شامل دمای ۲6–۲2 درجه سانتیگراد، رطوبت 6۵–5۵ درصد و چرخه روشنایی–تاریکی ۱۲:۱۲ نگهداری شدند و دسترسی آزادانه به آب و غذای استاندارد داشتند.
القاء صرع: یک هفته پس از سازگاری حیوانات با محیط، موش¬ها با تزریق داخل صفاقی کلرال¬هیدرات 7% بی¬هوش شدند. القای صرع با تزریق درونهیپوکمپی کاینیک اسید (5/2 میکروگرم) تحت هدایت دستگاه استریوتاکسیک انجام شد. در گروه شم، تمامی مراحل بیهوشی، تثبیت در دستگاه استریوتاکسیک و ورود سوزن به هیپوکمپ مشابه گروههای دریافتکننده کاینیکاسید انجام شد،. این گروه برای کنترل اثرات ناشی از جراحی، بدون القای صرع، در طراحی پژوهش گنجانده شد. بروز تشنجها با استفاده از مقیاس رفتاری راسین ارزیابی و موفقیت القا تأیید شد. معمولاً نخستین حملات بین ۳۰ تا ۴۰ دقیقه پس از تزریق مشاهده گردید. شدت تشنجها مطابق طبقهبندی پنج مرحلهای راسین شامل: 1- خیره شدن؛ 2- حرکات خودکار صورت؛ 3- کلونوس اندامهای جلویی؛ 4- لرزش و افتادن؛ ۵- تشنج تونیک–کلونیک همراه با دویدن، ثبت شد (22).
پروتکل تمرینی: طراحی پروتکل براساس مطالعه مارتینز و همکاران در سال 2018 انجام گرفت (23). برنامه تمرینی به مدت ۸ هفته، پنج جلسه در هفته، هر جلسه 45 دقیقه و بهصورت تداومی با شدت متوسط اجرا شد. هر جلسه شامل 5 دقیقه گرم کردن و 40 دقیقه دویدن با سرعت 60% حداکثر سرعت دویدن (Vmax) بود. برای تعیین Vmax، ابتدا حیوانات ۵ دقیقه با سرعت ۱۲ متر در دقیقه گرم شدند، سپس سرعت هر ۳ دقیقه سه متر افزایش یافت. آزمون زمانی خاتمه یافت که حیوان، باوجود تشویق، قادر به ادامه دویدن نبود. آخرین سرعتی که حیوان توانست آن را حفظ کند، بهعنوان Vmax در نظر گرفته شد. این آزمون در ابتدای مطالعه (هفته صفر) و مجدداً در پایان هفته چهارم تکرار شد و سرعت تمرین متناسب با نتایج جدید تنظیم گردید.
پایش فراوانی تشنج: شدت تشنجها هفته هشتم، طی بازه زمانی شش صبح تا شش عصر مورد ارزیابی قرار گرفت. در این مدت پنج مشاهدهگر آموزشدیده بهطور مداوم قفسهای حیوانات را تحتنظر داشتند. لازم به ذکر است که مشاهدهگران نسبت به گروهبندی حیوانات آگاهی نداشتند. شدت تشنجها بر اساس مقیاس اصلاحشده راسین، مطابق با دستورالعمل¬های پیشین، ثبت گردید (22).
بافتبرداری و سنجش پروتئینها: برای کاهش اثرات حاد ناشی از آخرین جلسه تمرین و ارزیابی سازگاریهای نسبتاً پایدار ناشی از دوره تمرینی، نمونهبرداری ۴۸ ساعت پس از پایان آخرین جلسه تمرین انجام شد. انتخاب این فاصله زمانی بر این اساس بود که برخی پاسخهای فیزیولوژیک و مولکولی ناشی از یک جلسه تمرین میتوانند تا ۲۴ الی ۴۸ ساعت باقی بمانند و نمونهبرداری زودهنگام ممکن است تفکیک اثرات حاد آخرین جلسه تمرین از سازگاریهای مزمن تمرینی را دشوار کند (24،25). حیوانات با تزریق داخلصفاقی کتامین 50–30 میلیگرم بر کیلوگرم و زایلازین 5–3 میلیگرم بر کیلوگرم بیهوش شدند. پس از خارجسازی مغز، بافت هیپوکمپ بهسرعت جدا و تا زمان انجام آزمایش در دمای ۷۰- درجه سانتیگراد نگهداری شد. برای استخراج پروتئین، نمونههای هیپوکمپ در ۱۰۰ میکرولیتر محلول لیز سلولی Pro-PREP™ حاوی مهارکننده پروتئاز همگنسازی شدند. تمام مراحل استخراج پروتئین روی یخ انجام شد تا از تخریب حرارتی پروتئینها جلوگیری شود. سپس نمونهها بهمدت ۲۰ دقیقه در دمای ۲۰- درجه سانتیگراد قرار گرفتند و پس از آن با سرعت ۱۳۰۰۰ دور در دقیقه بهمدت ۱۵ دقیقه در دمای ۴ درجه سانتیگراد سانتریفیوژ (Hettich universal 320R, Germany) شدند. محلول رویی جمعآوری شد و غلظت پروتئین کل با استفاده از کیت BCA (iNtRON Biotechnology, Korea) و دستگاه اسپکتروفتومتر(Smartspec Plus spectrophotometer, Bio-Rad) اندازهگیری گردید. برای انجام وسترنبلات، مقدار ۵۰ میکروگرم از پروتئین کل هر نمونه با بافر لاملی مخلوط و بهمدت ۵ دقیقه جوشانده شد. سپس نمونهها روی ژل پلیآکریلآمید SDS-PAGE با ژل جداکننده %10 و ژل متراکمکننده %5 بارگذاری شدند. الکتروفورز ابتدا با ولتاژ ۸۰ ولت و سپس با ولتاژ ۱۸۰ ولت انجام شد. پس از جداسازی پروتئینها بر اساس وزن مولکولی، پروتئینها از ژل به غشای PVDF با قطر منافذ دو میکرومتر منتقل شدند. انتقال پروتئینها در بافر ترانسفر و با جریان ۳۰۰ میلیآمپر بهمدت ۷۵ دقیقه انجام شد. کیفیت انتقال پروتئینها با رنگآمیزی پونسو S بررسی گردید. پس از انتقال، غشاها بهمدت یک ساعت در دمای اتاق با محلول مسدودکننده شامل TBST و%۵ آلبومین سرم گاوی مسدود شدند. سپس غشاها با آنتیبادیهای اولیه اختصاصی علیه GABA، GAD65، GAD67 و GAT3 در دمای ۴ درجه سانتیگراد بهمدت یک شب انکوبه شدند. پس از شستشو با TBST، غشاها با آنتیبادی ثانویه کونژوگه با HRP بهمدت یک ساعت در دمای اتاق انکوبه شدند. در ادامه، باندهای پروتئینی با استفاده از محلول ECL آشکارسازی شدند. شدت باندهای حاصل با استفاده از نرمافزار ImageJ اندازهگیری شد. برای کنترل تفاوت در میزان بارگذاری پروتئین، شدت باندهای مربوط به هر پروتئین نسبت به β-actin نرمالسازی گردید و مقادیر نهایی بهصورت نسبت بیان نسبی پروتئین هدف به β-actin گزارش شد (26،27).
تجزیه وتحلیل آماری
داده¬ها بهصورت میانگین Mean و انحراف معیار Standard deviation (Mean ±SD) گزارش شدند. برای متغیرهای، GABA، GAD65، GAD67 و GAT3 آنوای یکطرفه One-way ANOVA با آزمون تعقیبی توکی (Tukey’s post hoc) برای مقایسه چندگانه استفاده شد. نرمال بودن دادهها با آزمون آزمون شاپیرو-ویلک Shapiro Wilk و همگنی واریانسها با آزمون لون Leven ارزیابی شد. با توجه به اینکه القای صرع تنها در گروههای صرع و MICT انجام شد، مقایسه شدت و فراوانی تشنج صرفاً بین این دو گروه و با استفاده از آزمون Mann–Whitney U انجام شد. سطح معناداری 05/0درنظر گرفته شد و تمامی تحلیلها با نرمافزارversion 16 SPSS انجام شد.
نتایج
GABA: نتایج آزمون تحلیل واریانس یکطرفه نشان داد که بین گروه¬های پژوهشی تفاوت معنا¬داری در متغیر GABA وجود دارد (0001/0>P ، 846/199 = (3،28) درجه آزادی). آزمون تعقیبی توکی نشان داد، در مقایسه بین گروه صرع و کنترل و صرع و شم اختلاف معنادار وجود دارد اما بین گروه صرع و صرع+MICT اختلاف معناداری وجود ندارد (شکل 1).
GAD67: نتایج آزمون تحلیل واریانس یکطرفه نشان داد که بین گروه¬های پژوهشی تفاوت معناداری در متغیر GAD67 وجود دارد (0001/0 >P ، 786/75 = (3،28) درجه آزادی). آزمون تعقیبی توکی نشان داد بین گروه¬های صرع و کنترل، شم و صرع و همچنین صرع و صرع+MICT اختلاف معنادار وجود دارد (شکل2).
GAD65: نتایج آزمون تحلیل واریانس یکطرفه نشان داد که بین گروه¬های پژوهشی تفاوت معناداری در متغیر GAD65 وجود دارد (0001/0>P ، 271/126 = (3،28) درجه آزادی). آزمون تعقیبی توکی نشان داد که در مقایسه بین گروه صرع با کنترل و صرع با شم اختلاف معنادار وجود دارد اما بین گروه صرع و صرع+MICT اختلاف معنادار وجود ندارد (شکل3).
GAT3: نتایج آزمون تحلیل واریانس یکطرفه نشان داد که بین گروههای پژوهشی تفاوت معناداری در متغیر GAT3 وجود دارد (0001/0>P ، 814/34 = (3،28) درجه آزادی). آزمون تعقیبی توکی نشان داد که در مقایسه بین گروه صرع و کنترل اختلاف معنادار وجود دارد و سطح GAT3 در گروه صرع بهطور قابلتوجهی بالاتر از تمامی گروههای دیگر بود. همچنین بین گروه صرع و صرع+MICT و صرع با شم اختلاف معنادار وجود داشت و سطح GAT3 در گروه صرع+MICT کمتر بود. (شکل 4).
شدت تشنج: نتایج آزمون Mann–Whitney U نشان داد که شدت تشنج در گروه MICT در مقایسه با گروه صرع، در شش روز از هفت روز متوالی هفته هشتم بهطور معناداری کمتر بود. این اختلاف در روز اول (5/12=U، 003/0=p)، روز دوم (34=U، 247/0=p)، روز سوم (5/17=U، 0.011=p)، روز چهارم (5/19=U، 019/0=p)، روز پنجم (13=U، 004/0=p)، روز ششم (20=U، 023/0=p)، روز هفتم (15=U، 007/0=p) مشاهده شد؛ در حالیکه در روز دوم تفاوت معناداری بین دو گروه وجود نداشت. دادهها بهصورت میانه گزارش شدند و در تمامی روزهای ارزیابی، میانه شدت تشنج در گروه MICT پایینتر از گروه صرع بود. در مجموع، این یافتهها نشان میدهد که تمرین MICT با کاهش نسبتاً پایدار شدت تشنج طی هفته پایانی پژوهش همراه بوده است (شکل 5).
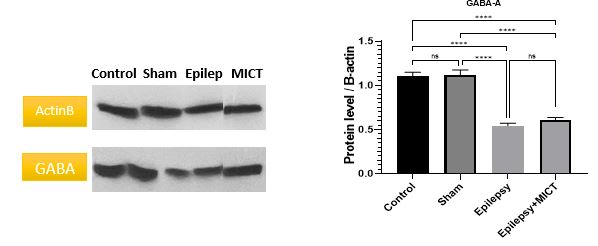
شکل1: تغییرات سطوح بیان پروتئین GABA در هیپوکمپ موش¬های مبتلا به صرع.
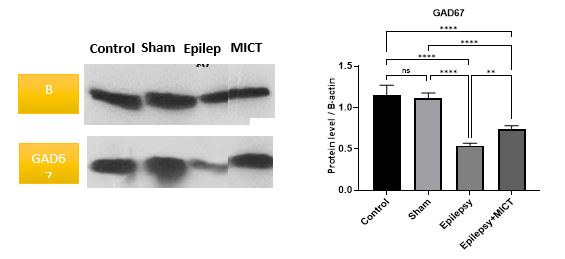
شکل2: تغییرات سطوح بیان پروتئینGAD67 در هیپوکمپ موش¬های مبتلا به صرع.
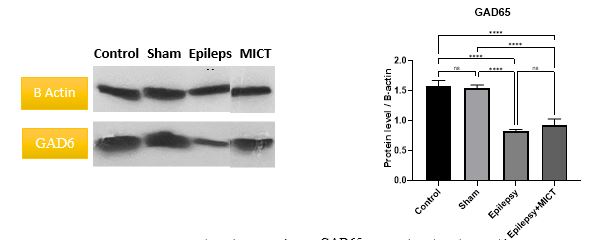
شکل3: تغییرات سطوح بیان پروتئین GAD65 در هیپوکمپ موش¬های مبتلا به صرع
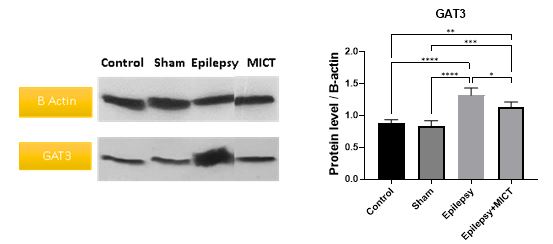
شکل4: تغییرات سطوح بیان پروتئین GAT3 در هیپوکمپ موش¬های مبتلا به صرع.
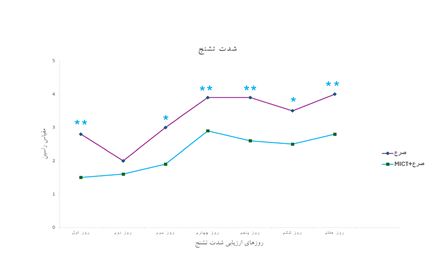
شکل 5: تغییرات شدت تشنج بین دوگروه صرع و MICT در طول هفته هشتم
بحث
یافتههای اصلی مطالعه: یافتههای مطالعه حاضر نشان داد که القای صرع با کاینیکاسید موجب کاهش معنادار سطوح GABA، GAD65، GAD67 و افزایش معنادار GAT3 در هیپوکمپ موش¬ها شد. این الگو نشان میدهد که صرع القاشده با کاینیکاسید با تضعیف ظرفیت مهاری سیستم گاباآرژیک همراه است. کاهش همزمان GABA و آنزیمهای سنتزکننده آن، بهویژه GAD67، میتواند بیانگر کاهش توان تولید و حفظ تون مهاری در هیپوکمپ باشد؛ موضوعی که از نظر عملکردی میتواند به افزایش تحریکپذیری نورونی و تسهیل بروز فعالیتهای تشنجی منجر شود. این یافته با گزارشهایی همسو است که کاهش GABA و GADها را در برخی مدلهای حیوانی و انسانی صرع گزارش کردهاند (3،21،28،29). نکته قابلتوجه دیگر در نتایج حاضر، افزایش GAT3 در گروه صرع بود. GAT3 عمدتاً در آستروسیتها بیان میشود و در پاکسازی GABA از فضای خارجسلولی نقش دارد؛ از اینرو، افزایش آن میتواند باعث افزایش برداشت GABA و کاهش دسترسی خارجسلولی آن شود و بهصورت بالقوه مهار تونیک یا سیناپسی را تضعیف کند (30). بنابراین، الگوی مشاهدهشده در گروه صرع، یعنی کاهش GABA همراه با افزایش GAT3، میتواند در مجموع به سمت کاهش کارایی مهار گاباآرژیک و افزایش تحریکپذیری تشنجی تفسیر شود. از سوی دیگر، ۸ هفته تمرینات MICT موجب کاهش معنادار شدت تشنجها، افزایش معنادار GAD67و کاهش معنادار GAT3 در هیپوکمپ موشهای مبتلا به صرع شد، در حالیکه تغییر معناداری در GABA و GAD65 مشاهده نشد. بنابراین، بهنظر میرسد تمرین تداومی با شدت متوسط بخشی از اختلال گاباآرژیک ناشی از صرع را عمدتاً از طریق افزایش ظرفیت سنتز پایه GABA و کاهش پاکسازی خارجسلولی آن تعدیل کرده باشد.
مقایسه با مطالعات قبلی: اثر مهاری گابا بر تحریک پذیری عصبی در مغز بالغ در درجه اول توسط اتصال آن به گیرندههای GABA-A انجام می شود که منجر به هجوم یون های کلرید (Cl−) و هایپرپلاریزاسیون سلولی میشود، اگرچه اثرات آن بر سایر زیرگروه های گیرنده گابا نیز ممکن است در این امر نقش داشته باشد (3). همچنین، از بین رفتن یا اختلال عملکرد اینترنورونهای مهاری میتواند با کاهش آزادسازی GABA، کاهش مهار سلولهای اصلی تحریکی و تسهیل بروز تشنج و صرع همراه باشد (6). در همین راستا، سیلورمن و همکاران در سال 2018 گزارش کردند که GABA-T یکی از آنزیمهای اصلی در کاتابولیسم GABA است و مهار این آنزیم میتواند با افزایش سطح GABA، تقویت مهار عصبی و کاهش فعالیت بیشازحد نورونی در صرع همراه باشد (5). افزایش GAD67 پس از تمرین از این جهت اهمیت دارد که GAD67 بیشتر با تولید پایه GABA و حفظ تون مهاری مرتبط است، در حالیکه GAD65 بیشتر در شرایط وابسته به فعالیت و تنظیم سریعتر انتقال گاباآرژیک نقش دارد (18). این یافته با مطالعه لیم و همکاران در سال 2015 همسو است؛ آنها گزارش کردند که تشنج ناشی از پیلوکارپین موجب کاهش بیان GAD67 در ناحیه CA1 هیپوکمپ میشود و تمرین با نوارگردان میتواند بیان GAD67 را در هیپوکمپ موش¬های مبتلا به صرع افزایش دهد (21). همچنین گزارش شده است که فعالیت ورزشی میتواند مسیرهای مرتبط با BDNF و TrkB، بقا و عملکرد نورونهای گاباآرژیک را در موش¬های مبتلا به صرع بهبود دهد (21).
مکانیسم¬های پیشنهادی: یافته مهم دیگر مطالعه حاضر، کاهش معنادار بیان GAT3 پس از ۸ هفته تمرینات MICT بود. از آنجا که GAT3 در پاکسازی GABA نقش دارد، کاهش بیان آن میتواند به افزایش مدت حضور GABA در فضای خارجسلولی و تقویت سیگنالدهی مهاری کمک کند (30). بنابراین، کاهش GAT3 همراه با افزایش GAD67 میتواند بهصورت یک الگوی همافزا در جهت تقویت مهار و بهبود تون مهاری در شبکههای هیپوکمپی تفسیر شود. تا آنجا که بررسی منابع نشان میدهد، مطالعه مستقیمی که اثر فعالیت ورزشی را بر GAT3 در مدل صرع بررسی کرده باشد محدود است؛ بنابراین، کاهش GAT3 پس از تمرین MICT میتواند یکی از جنبههای جدید مطالعه حاضر باشد. این یافته پیشنهاد میکند که بخشی از اثرات مفید MICT احتمالاً از طریق تنظیم هموستاز GABA، یعنی افزایش ظرفیت تولید و کاهش پاکسازی خارجسلولی آن، اعمال میشود. همچنین، با توجه به اینکه التهاب عصبی و استرس اکسیداتیو میتوانند عملکرد سیستم گاباآرژیک را مختل کنند (18) و شواهدی وجود دارد که فعالیت ورزشی میتواند این عوامل را در زمینه صرع کاهش دهد (17،31)، میتوان این فرضیه را مطرح کرد که بهبود GAD67 و کاهش GAT3 تا حدی از طریق کاهش فشارهای التهابی–اکسیداتیو و تعدیل عملکرد گلیال رخ داده باشد. با اینحال، چون در مطالعه حاضر شاخصهای التهاب عصبی و استرس اکسیداتیو بهطور مستقیم اندازهگیری نشدند، این تفسیر باید با احتیاط مطرح شود. در مقابل، در مطالعه حاضر تغییر معناداری در GABA و GAD65 پس از ۸ هفته تمرینات MICT مشاهده نشد. عدم تغییر معنادار GAD65 میتواند به ماهیت عملکردی آن مربوط باشد؛ زیرا GAD65 بیشتر در پاسخهای وابسته به فعالیت و نیازهای سریع سیناپسی نقش دارد و ممکن است برای بروز تغییرات قابل تشخیص در آن، مدت طولانیتر تمرین، شدت متفاوت یا زمان نمونهبرداری دیگری لازم باشد (32). همچنین، عدم افزایش معنادار سطح GABA با وجود افزایش GAD67 ممکن است نشان دهد که تغییرات تولید، برداشت، ذخیرهسازی و متابولیسم GABA الزاماً بهصورت همزمان و همجهت رخ نمیدهند.
محدودیت¬ها و پیشنهادها
مطالعه حاضر چند محدودیت دارد. نخست، فقط سطح GABA و بیان پروتئینی GAD65،GAD67 و GAT3 در کل هیپوکمپ بررسی شد و نواحی مختلف هیپوکمپ مانند CA1، CA3و دنتیت ژایروس بهصورت جداگانه ارزیابی نشدند. دوم، شاخصهای التهاب عصبی، استرس اکسیداتیو و عوامل نوروتروفیک بهطور همزمان اندازهگیری نشدند؛ بنابراین، ارتباط مستقیم این مسیرها با تغییرات مشاهده شده در GAD67 و GAT3 قابل اثبات نیست. سوم، مطالعه فقط روی موش¬های صحرایی نر انجام شد و تعمیم نتایج به جنس ماده یا سایر مدلهای صرع نیازمند بررسیهای بیشتر است. پیشنهاد میشود در مطالعات آینده، اثر شدتها و مدتهای مختلف تمرین بر سیستم گاباآرژیک بررسی شود و علاوه بر سطح پروتئین، بیان ژنی، فعالیت آنزیمی، شاخصهای التهابی–اکسیداتیو و ثبتهای الکتروفیزیولوژیک نیز ارزیابی گردد. همچنین، بررسی جداگانه نواحی مختلف هیپوکمپ میتواند تصویر دقیقتری از اثرات تمرین بر مدارهای مهاری در صرع ارائه دهد.
نتیجهگیری
در نهایت، با توجه به نتایج این پژوهش میتوان نتیجه گرفت که القای صرع با کاینیکاسید موجب تضعیف مؤلفههای کلیدی سیستم مهاری در هیپوکمپ، شامل کاهش GABA، GAD65 و GAD67، و افزایش شاخص مرتبط با پاکسازی GABA یعنی GAT3 میشود. در مقابل، تمرینات MICT میتوانند بخشی از این اختلال را از طریق افزایش GAD67 و کاهش GAT3 تعدیل کنند. بنابراین، تمرین تداومی با شدت متوسط احتمالاً از مسیر بهبود نسبی ظرفیت مهار گاباآرژیک در هیپوکمپ، در کاهش اختلالات مرتبط با صرع نقش دارد.
سپاسگزاری
این مقاله برگرفته از رساله دکتری نویسنده اول میباشد. با تشکر از همه عزیزانی که ما را در اجرای این پژوهش یاری رساندند.
حامی مالی
ندارد.
تعارض در منافع
وجود ندارند.
ملاحظات اخلاقی
تمام مراحل این پژوهش توسط کمیته اخلاق دانشکده علوم ورزشی و تندرستی دانشگاه تهران به شماره IR.UT.SPORT.REC.1403.067 مورد تایید قرار گرفت.
اظهارنامه استفاده از فناوری هوش مصنوعی
در این پژوهش برای اصلاح چکیده انگلیسی از ChatGPT شرکت OpenAIاستفاده شده است. در نگارش و تجزیه و تحلیل دیتا ها از هوش مصنوعی استفاده نشده است.
دسترسپذیری داده ها
داده های خام این مطالعه از طریق درخواست از نویسنده مسئول ارائه خواهد شد.
مشارکت نویسندگان
محمد رضا کردی و امیر حسین صفار کهنه قوچان در ارائه ایده و طراحی مطالعه و سحر صمیمی در جمعآوری و تجزیه و تحلیل دادهها مشارکت داشته و همه نویسندگان در تدوین، ویرایش اولیه و نهایی مقاله و پاسخگویی به سوالات مرتبط با مقاله سهیم هستند.
References
1. Zhao W, Xie C, Zhang X, Liu J, Liu J, Xia Z. Advances in the mTOR signaling pathway and its inhibitor rapamycin in epilepsy. Brain Behav. 2023; 13(6): e2995.
2. Sarlo GL, Holton KF. Brain concentrations of glutamate and GABA in human epilepsy: A review. Seizure. 2021; 91: 213-27.
3. Perucca E, Bialer M, White HS. New GABA-Targeting Therapies for the Treatment of Seizures and Epilepsy: I. Role of GABA as a Modulator of Seizure Activity and Recently Approved Medications Acting on the GABA System. CNS Drugs. 2023; 37(9): 755-79.
4. Zhou Y, Danbolt NC. Glutamate as a neurotransmitter in the healthy brain. J Neural Transm (Vienna). 2014; 121(8): 799-817.
5. Silverman RB. Design and Mechanism of GABA Aminotransferase Inactivators. Treatments for Epilepsies and Addictions. Chem Rev. 2018; 118(7): 4037-70.
6. Liu YQ, Yu F, Liu WH, He XH, Peng BW. Dysfunction of hippocampal interneurons in epilepsy. Neurosci Bull. 2014; 30(6): 985-98.
7. Gulias-Cañizo R, Ruíz-Leyja ED, Sánchez-Castillo H, Parodí J, Ochoa-de la Paz LD. The role of GABA neurotransmitter in the human central nervous system, physiology, and pathophysiology. Rev Mex Neuroci. 2021; 22(2): 67-76.
8. Barzroodi Pour M, Bayat M, Navazesh A, Soleimani M, Karimzadeh F. Exercise improved the anti-epileptic effect of carbamazepine through gaba enhancement in epileptic rats. Neurochem Res. 2021; 46(8): 2112-30.
9. Yadav R, Han GW, Gati C. Molecular basis of human GABA transporter 3 inhibition. Nat Commun. 2025; 16(1): 3830.
10. DeLeeuw MB, Shen W, Tian X, Ding C, Randhave K, Kang JQ. 4-Phenylbutyrate restored GABA uptake, mitigated seizures in SLC6A1 and SLC6A11 microdeletions/3p- syndrome: From cellular models to human patients. Epilepsy Res. 2025; 210: 107514.
11. Mortensen JS, Bavo F, Smiszek Pedersen AP, Storm JP, Pape T, Frølund B, et al. Structural basis for selective inhibition of human GABA transporter GAT3. Nat Commun. 2026; 17:1774
12. Cavalcante BRR, Improta-Caria AC, Melo VH, De Sousa RAL. Exercise-linked consequences on epilepsy. Epilepsy Behav. 2021; 121(Pt A): 108079.
13. Häfele CA, Rombaldi AJ, Feter N, Häfele V, Gervini BL, Domingues MR, et al. Effects of an exercise program on health of people with epilepsy: A randomized clinical trial. Epilepsy Behav. 2021; 117: 107904.
14. Feter N, Spanevello RM, Soares MSP, Spohr L, Pedra NS, Bona NP, et al. How does physical activity and different models of exercise training affect oxidative parameters and memory? Physiol Behav. 2019; 201: 42-52.
15. Ribarič S. Physical Exercise, a Potential Non-Pharmacological Intervention for Attenuating Neuroinflammation and Cognitive Decline in Alzheimer’s Disease Patients. Int J Mol Sci. 2022; 23(6): 3245.
16. Arida RM, Fernandes MJ, Scorza FA, Preti SC, Cavalheiro EA. Physical training does not influence interictal LCMRglu in pilocarpine-treated rats with epilepsy. Physiol Behav. 2003; 79(4-5): 789-94.
17. de Lima Rosa G, Guzzo EFM, Nunes SEB, Padilha RB, Domingues AM, Barbosa BB, et al. Aerobic exercise, alone or combined with an anti-inflammatory drug, reduces the severity of epileptic seizures and levels of central pro-inflammatory cytokines in an animal model of epileptic seizures. Epilepsy Res. 2022; 186: 107018.
18. Barzroodi Pour M, Bayat M, Golab F, Eftekharzadeh M, Katebi M, Soleimani M, et al. The effect of exercise on GABA signaling pathway in the model of chemically induced seizures. Life Sci. 2019; 232: 116667.
19. Cerqueira É, Marinho DA, Neiva HP, Lourenço O. Inflammatory Effects of High and Moderate Intensity Exercise-A Systematic Review. Front Physiol. 2019; 10: 1550.
20. Kami K, Taguchi Ms S, Tajima F, Senba E. Improvements in impaired GABA and GAD65/67 production in the spinal dorsal horn contribute to exercise-induced hypoalgesia in a mouse model of neuropathic pain. Mol Pain. 2016; 12: 1744806916629059.
21. Lim BV, Shin MS, Lee JM, Seo JH. Treadmill exercise prevents GABAergic neuronal loss with suppression of neuronal activation in the pilocarpine-induced epileptic rats. J Exerc Rehabil. 2015; 11(2): 80-6.
22. Racine RJ. Modification of seizure activity by electrical stimulation. II. Motor seizure. Electroencephalogr Clin Neurophysiol. 1972; 32(3): 281-94.
23. Martinez-Huenchullan SF, Maharjan BR, Williams PF, Tam CS, McLennan SV, Twigg SM. Differential metabolic effects of constant moderate versus high intensity interval training in high-fat fed mice: possible role of muscle adiponectin. Physiol Rep. 2018; 6(4): e13599.
24. Giusti B, Marini M, Rossi L, Lapini I, Magi A, Capalbo A, et al. Gene expression profile of rat left ventricles reveals persisting changes following chronic mild exercise protocol: implications for cardioprotection. BMC Genomics. 2009; 10: 342.
25. Darragh IAJ, O’Driscoll L, Egan B. Exercise Training and Circulating Small Extracellular Vesicles: Appraisal of Methodological Approaches and Current Knowledge. Front Physiol. 2021; 12: 738333.
26. Taylor SC, Posch A. The design of a quantitative western blot experiment. Biomed Res Int. 2014; 2014: 361590.
27. Schneider CA, Rasband WS, Eliceiri KW. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 2012; 9(7): 671-5.
28. Treiman DM. GABAergic mechanisms in epilepsy. Epilepsia. 2001; 42(Suppl 3): 8-12.
29. Feng Y, Wei ZH, Liu C, Li GY, Qiao XZ, Gan YJ, et al. Genetic variations in GABA metabolism and epilepsy. Seizure. 2022; 101: 22-9.
30. Scimemi A. Structure, function, and plasticity of GABA transporters. Front Cell Neurosci. 2014; 8: 161.
31. Xie Y, Gu Y, Li Z, Zhang L, Hei Y. Effects of exercise on different antioxidant enzymes and related indicators: a systematic review and meta-analysis of randomized controlled trials. Sci Rep. 2025; 15(1): 12518.
32. Kanaani J, Kolibachuk J, Martinez H, Baekkeskov S. Two distinct mechanisms target GAD67 to vesicular pathways and presynaptic clusters. J Cell Biol. 2010; 190(5): 911-25.
متن کامل: (8 مشاهده)
Original Article
Investigating the Effect of Eight Weeks of Moderate-Intensity Continuous Training on the Expression of GABA, GAD65, GAD67, and GAT3 Proteins in the Hippocampus of Rats with Epilepsy
Sahar Samimi1 , Mohammad Reza Kordi2 , Amir Hossein Saffar Kohneh Quchan2
1 PhD student in Exercise Physiology, Kish International Campus, University of Tehran, Kish, Iran
2 Department of Exercise Physiology, Faculty of Sports Sciences and Health, University of Tehran, Tehran, Iran
Abstract
Corresponding author:
Department of Exercise Physiology, Faculty of Sports Sciences and Health, University of Tehran, Tehran, Iran
Email: mrkordi@ut.ac.ir
Tel: +982161118838
Postal Code: 9471863391
Received: 7 Jan 2026
Revised: 30 Jun 2026
Accepted: 5 Aug 2026
How to Cite this Article:
Samimi S, Kordi M.R, Saffar Kohneh Quchan A.H. Investigating the Effect of Eight Weeks of Moderate-Intensity Continuous Training on the Expression of GABA, GAD65, GAD67, and GAT3 Proteins in the Hippocampus of Rats with Epilepsy. J Shahid Sadoughi Uni Med Sci 2026; 34(7): 10438-450.
Introduction: The impairment of the GABAergic system plays an important role in increasing the excitability of hippocampal networks and the persistence of seizures in epilepsy. The present study aimed to investigate the effects of eight weeks of moderate-intensity continuous training (MICT) on the expression of GABA, GAD65, GAD67, and GAT3 proteins in the hippocampus of epileptic rats.
Methods: In this study, 32 male Wistar rats, aged 6–8 weeks, were randomly assigned to four groups: control, sham, epilepsy, and epilepsy+ MICT. Epilepsy was induced via intrahippocampal injection of kainic acid and confirmed using the Racine scale. The epilepsy+ MICT group performed an eight-week exercise intervention consisting of five sessions per week; each session lasted 45 minutes, with 40 minutes of running at 60% Vmax. Forty-eight hours after completion of the protocol, the hippocampus was extracted, and protein expression was measured using western blotting. Data analysis was performed using one-way ANOVA and Tukey's post hoc test at a significance level of 0.05 with SPSS software.
Results: Epilepsy induction significantly decreased the expression levels of GABA, GAD65, and GAD67 compared with the control group (P<0.0001). In the epilepsy+ MICT group, GAD67 expression significantly increased and differed significantly from that in the epilepsy group (P<0.0001), whereas the changes in GABA and GAD65 levels were not found to be statistically significant compared with the epilepsy group. Moreover, GAT3 expression was significantly higher in the epilepsy group than in the other groups, and the MICT intervention significantly reduced its expression (P<0.0001). Seizure severity was also significantly lower in the MICT group than in the epilepsy group.
Conclusion: Moderate-intensity continuous training may help reduce seizure severity in epileptic rats and partially attenuate hippocampal inhibitory-system dysfunction by increasing GAD67 and decreasing GAT3.
Keywords: Epilepsy, MICT, GABA، GAD، GAT3
This work is licensed under a Creative Commons Attribution 4.0 Unported License which allows users to read, copy, distribute and make derivative works for non-commercial purposes from the material, as long as the author of the original work is cited properly.
Extended Abstract
Introduction
One of the key mechanisms in the pathophysiology of epilepsy is an imbalance between excitation and inhibition of neural activity. This imbalance is associated with increased extracellular glutamate or decreased gamma-aminobutyric acid (GABA) concentration, leading to excitotoxicity, seizures, and cell death. GABA is synthesized from glutamate by the enzyme glutamic acid decarboxylase, whose two main isoforms, GAD65 and GAD67, play key roles in regulating GABA storage and synthesis. Additionally, GABA reuptake transporters, particularly GAT1 and GAT3, which are mainly expressed in glial cells, play a determining role in maintaining synaptic inhibition by regulating extracellular GABA concentration. In recent years, regular physical exercise has been proposed as a low-risk and accessible non-pharmacological intervention for the management of neurological disorders, including epilepsy. The aim of the present study was to investigate the effect of 8 weeks of moderate-intensity continuous training (MICT) on the protein expression of GABA, GAD65, GAD67, and GAT3 in the hippocampus of epileptic rats.
Methods
In this study, 32 male Wistar rats aged 6–8 weeks with a mean weight of 226.6 ± 14.9 g were obtained from the Pasteur Institute of Iran. The animals were randomly divided into four equal groups: 1) healthy control group: healthy rats that received no epilepsy induction or exercise intervention; 2) epilepsy group: rats in which epilepsy was induced by intrahippocampal injection of kainic acid; 3) sham group: rats that underwent all procedures of anesthesia, stereotaxic fixation, and needle insertion similar to the epilepsy group, but did not receive kainic acid; 4) epilepsy + MICT group: rats that performed the moderate-intensity continuous training protocol for 8 weeks after epilepsy induction. One week after acclimatization to the environment, the rats were anesthetized with intraperitoneal injection of 7% chloral hydrate. Epilepsy induction was performed by intrahippocampal injection of kainic acid (2.5 µg) under stereotaxic guidance. Seizure occurrence was evaluated using the Racine behavioral scale, and induction success was confirmed. Typically, the first seizures were observed between 30 and 40 minutes after injection. Seizure severity was recorded according to the five-stage Racine classification: 1) staring; 2) automatic facial movements; 3) forelimb clonus; 4) rearing and falling; 5) tonic–clonic seizures with running. The training program was performed for 8 weeks, five sessions per week, each session lasting 45 minutes, continuously at moderate intensity. Each session consisted of 5 minutes of warm-up and 40 minutes of running at 60% of maximum running speed (Vmax). Forty-eight hours after the end of the protocol, the hippocampus was extracted and protein expression was measured by Western blot. Data analysis was performed using one-way ANOVA and Tukey's post hoc test at a significance level of 0.05 with SPSS version 16 software.
Results
The results of the one-way ANOVA revealed a significant difference in GABA levels among the research groups (F(3,28) = 199.846, P < 0.0001). Tukey's post hoc test indicated significant differences between the epilepsy and control groups, as well as between the epilepsy and sham groups. However, no significant difference was observed between the epilepsy and epilepsy + MICT groups. Regarding GAD67, the one-way ANOVA demonstrated a significant difference among the research groups (F(3,28) = 75.786, P < 0.0001). Tukey's post hoc test revealed significant differences between the epilepsy and control groups, between the sham and epilepsy groups, and also between the epilepsy and epilepsy + MICT groups. For GAD65, the one-way ANOVA showed a significant difference among the research groups (F(3,28) = 126.271, P < 0.0001). Tukey's post hoc test revealed significant differences between the epilepsy and control groups and between the epilepsy and sham groups, but no significant difference between the epilepsy and epilepsy + MICT groups. Finally, for GAT3, the one-way ANOVA indicated a significant difference among the research groups (F(3,28) = 34.814, P < 0.0001). Tukey's post hoc test showed a significant difference between the epilepsy and control groups, with GAT3 levels in the epilepsy group being considerably higher than in all other groups. Additionally, significant differences were found between the epilepsy and epilepsy + MICT groups and between the epilepsy and sham groups, with GAT3 levels being lower in the epilepsy + MICT group. Overall, the results indicate that epilepsy induction produced significant alterations in key components of the GABAergic system, including GABA, GAD67, GAD65, and GAT3. Moreover, MICT appeared to exert differential effects on these markers, with significant changes observed in GAD67 and GAT3, but not in GABA and GAD65, in epileptic rats.
Conclusion
In conclusion, based on the findings of the present study, it can be inferred that epilepsy induction with kainic acid weakens key components of the inhibitory system in the hippocampus, including decreased GABA, GAD65, and GAD67, and increased levels of GAT3, a marker associated with GABA clearance. In contrast, MICT can partially modulate this impairment by increasing GAD67 and decreasing GAT3. Therefore, moderate-intensity continuous training may contribute to reducing epilepsy-related disorders, likely through the pathway of relative improvement in hippocampal GABAergic inhibitory capacity.
مقاله پژوهشی
بررسی تاثیر 8 هفته تمرینات تداومی با شدت متوسط بر بیان پروتئین¬های GABA، GAD65، GAD67 و GAT3 در هیپوکمپ موش¬های صحرایی مبتلا به صرع
سحر صمیمی 1 ، محمدرضا کردی 2 ، امیرحسین صفار کهنه قوچان2
1 دانشجوی دکترای تخصصی فیزیولوژی ورزشی، پردیس بین المللی کیش، دانشگاه تهران، کیش، ایران
2 گروه فیزیولوژی ورزشی، دانشکده علوم ورزشی و تندرستی، دانشگاه تهران، تهران، ایران
چکیده
نویسنده مسئول:
محمدرضا کردی
گروه فیزیولوژی ورزشی، دانشکده علوم ورزشی و تندرستی، دانشگاه تهران، تهران، ایران
پست الکترونیک: mrkordi@ut.ac.ir
تلفن: 02161118838
صندوق پستی: 9471863391
تاریخ دریافت: 17/10/1404
تاریخ بازنگری: 9/4/1405
تاریخ پذیرش: 14/5/1405
ارجاع:
صمیمی سحر، کردی محمدرضا، صفارکهنه قوچان امیرحسین. بررسی تاثیر 8 هفته تمرینات تداومی با شدت متوسط بر بیان پروتئین¬های GABA، GAD65، GAD67 و GAT3 در هیپوکمپ موشهای صحرایی مبتلا به صرع. مجله علمی پژوهشی دانشگاه علوم پزشکی شهید صدوقی یزد 1405؛ 34 (7): 450-10438.
مقدمه: اختلال در سیستم گاباآرژیک نقش مهمی در افزایش تحریکپذیری شبکههای هیپوکمپی و تداوم تشنج در بیماری صرع دارد. هدف پژوهش حاضر بررسی اثر ۸ هفته تمرین تداومی با شدت متوسط (MICT) بر بیان پروتئینهای GABA، GAD65، GAD67 و GAT3 در هیپوکمپ موشهای صحرایی مبتلا به صرع بود.
روش بررسی: در این مطالعه، ۳۲ سر موش صحرایی نر نژاد ویستار (8–6 هفته) بهصورت تصادفی در چهار گروه قرار گرفتند: کنترل، شم، صرع و صرع+MICT. بیماری صرع با تزریق درونهیپوکمپی کاینیکاسید القا و بر اساس مقیاس راسین تأیید شد. گروه صرع+MICT به مدت ۸ هفته، ۵ جلسه در هفته، هر جلسه ۴۵ دقیقه (۴۰ دقیقه دویدن با ۶۰%Vmax) تمرین کرد. ۴۸ ساعت پس از پایان پروتکل، هیپوکمپ استخراج و بیان پروتئینها با وسترنبلات اندازهگیری شد. تحلیل دادهها با ANOVA یکطرفه و آزمون تعقیبی توکی در سطح معناداری 05/0 با نرمافزار SPSS version 16 انجام شد.
نتایج: القای صرع موجب کاهش معنادار GABA،GAD65 و GAD67 نسبت به گروه کنترل شد (0.0001>P). در گروه صرع+MICT، GAD67 بهطور معنادار افزایش یافت و نسبت به گروه صرع تفاوت معنادار نشان داد (0001/0>P)، در حالیکه تغییرات GABA و GAD65 نسبت به گروه صرع معنادار نبود. همچنین GAT3 در گروه صرع بهطور معناداری بالاتر از سایر گروهها بود و تمرین MICT آن را بهطور معنادار کاهش داد (0001/0>P). شدت تشنجها در گروه MICT در مقایسه با گروه صرع بهطور معنادار کاهش یافت.
نتیجهگیری: تمرین تداومی با شدت متوسط میتواند در موشهای صحرایی مبتلا به صرع با کاهش شدت تشنجها همراه باشد و بخشی از اختلال سیستم مهاری هیپوکمپ را از طریق افزایش GAD67 و کاهش GAT3 تعدیل کند.
واژههای کلیدی: صرع، تمرین تداومی با شدت متوسط، GABA، GAD، GAT3
مقدمه
صرع یک اختلال مزمن عصبی است که با بروز دو یا چند تشنج بدون علت مشخص و با فاصله حداقل 24 ساعت تعریف میشود. این اختلال حدود 50 میلیون نفر را در سراسر جهان درگیر کرده است و سالانه موجب بیش از 125هزار مورد مرگ می¬شود (1). با وجود پیشرفت¬های قابل¬توجه در درمان¬دارویی، حدود یک سوم بیماران به دارو مقاوم هستند؛ به این معنا که تشنج¬ها با وجود مصرف حداقل دو داروی ضد صرع مناسب، کنترل نمی¬شوند (2). علاوه بر این کاربرد آنها در درمان تشنج به دلیل تعدادی از عوامل از جمله، ایجاد وابستگی، عوارض جانبی از جمله خواب¬آلودگی، سرگیجه، خستگی، اختلال میدان بینایی و بروز وضعیت صرعی غیرتشنجی محدود شده است (3). این موضوع توجه پژوهشگران را به سوی شناسایی عوامل مؤثر در بروز تشنج و توسعه مداخلات غیر دارویی از جمله فعالیت ورزشی جلب کرده است. برای طراحی چنین مداخلاتی، شناخت سازوکارهای زیستی مؤثر در ایجاد و تداوم تشنج، بهویژه مکانیسمهای مرتبط با تعادل تحریک و مهار نورونی، ضروری است. یکی از مکانیسمهای کلیدی در پاتوفیزیولوژی صرع، عدم تعادل بین تحریک و مهار فعالیت¬های عصبی است. این عدم تعادل با افزایش گلوتامات خارج سلولی یا کاهش غلظت گاماآمینوبوتیریک¬اسید gamma Aminobutyric acid (GABA) مرتبط است که منجر به سمیت تحریکی، تشنج و مرگ سلولی می¬شود (2). گلوتامات بهعنوان مهمترین انتقالدهنده عصبی تحریکی در مغز نقش اساسی در فرآیندهایی مانند یادگیری، حافظه، شناخت و احساسات دارد و اختلال در متابولیسم آن با تشنج مرتبط است (4). سیلورمن و همکاران در سال 2018 گزارش کردند که آنزیم GABA-T در کاتابولیسم GABA نقش دارد و مهار این آنزیم میتواند بهعنوان یکی از راهبردهای افزایش سطح GABA، تقویت مهار عصبی و کنترل تشنج در صرع مطرح شود (5). مطالعات نشان می¬دهند کاهش انتقال عصبی گاباارژیک در مدلهای حیوانی متعدد صرع اکتسابی و ژنتیکی مرتبط است. بهعنوان مثال، از بین رفتن نورون¬های رابط مهاری منجر به کاهش آزادسازی گابا، کاهش مهار سلولهای اصلی تحریکی و تسهیل تشنج و صرع می¬شود (6). GABA اثرات مهاری خود را عمدتاً از طریق گیرندههای GABA_A و GABA_B اعمال میکند و سطح آن در سیناپس از طریق فرآیندهایی مانند سنتز توسط آنزیم گلوتامات دکربوکسیلاز و برداشت مجدد بهوسیله ناقلهای GAT تنظیم میشود (7). گابا از گلوتامات توسط آنزیم گلوتامیک اسید دکربوکسیلاز تولید میشود که دو ایزوفرم اصلی آن یعنی GAD65 و GAD67 در تنظیم ذخیره و سنتز گابا نقش کلیدی دارند. مطالعات نشان دادهاند که تغییر در بیان این دو ایزوفرم میتواند میزان GABA موجود در نورونها را تحتتأثیر قرار داده و حساسیت شبکه نورونی به تشنج را افزایش دهند (2،8). همچنین، ناقل¬های برداشت مجدد GABA، به ویژه GAT1 و GAT3 که عمدتاً در سلول¬های گلیال بیان میشوند، با تنظیم غلظت خارج سلولی GABA، نقش تعیین کننده¬ای در حفظ مهار سیناپسی دارند (9). اختلال در فعالیت یا بیان این ناقل¬ها در مدل¬های صرع گزارش شده و با افزایش تحریک نورونی همراه است (10). مورتنسن و همکاران در سال 2025 در مطالعه خود نشان دادند که برای افزایش سیگنالدهی GABAergic، مهار GAT3 مزیت درمانی نسبت به GAT1 ارائه میدهد. مهار GAT3 نهتنها سطح GABA سیناپسی را افزایش میدهد، بلکه همزمان منجر به کاهش متابولیسم اکسیداتیو GABA آستروسیتی میشود (11). بر این اساس، مداخلاتی که بتوانند تعادل تحریک–مهار را به نفع تقویت مسیرهای گاباآرژیک تعدیل کنند، ممکن است در کاهش تحریکپذیری عصبی و کنترل تشنج مؤثر باشند. در سال¬های اخیر فعالیت ورزشی منظم بهعنوان یک مداخله غیردارویی کمخطر و در دسترس، برای مدیریت اختلالات عصبی، از جمله صرع مطرح شده است (12). شواهد علمی نشان میدهد که فعالیت بدنی میتواند از طریق بهبود جریان خون مغزی (13)، کاهش استرس اکسیداتیو (14) و تعدیل التهاب عصبی (15) نقش حفاظتی در برابر تشنج داشته باشد. بهویژه تمرینات ورزشی با شدت متوسط، کم استرس و ایمن، کاهش فراوانی و شدت تشنج¬ را در مدل¬های انسانی و حیوانی مبتلا به صرع نشان داده¬اند (17-15). از سوی دیگر، عوامل التهابی مانند IL-6، IL-1β و TNF-αکه در پاتوژنز صرع نقش دارند، عملکرد گیرنده GABAA را مختل کرده و مهار نورونی را کاهش می¬دهند (18). تمرین شدید می¬تواند منجر به افزایش عوامل التهابی شود در حالیکه تمرینات با شدت متوسط باعث کاهش پایدار پروفایلهای التهابی می¬شوند (17،19). مطالعات متعددی نشان داده است که فعالیت ورزشی هوازی، کاهشGAD و گابا ناشی از صرع را مهار کرده و تعادل مهاری/تحریک را برقرار میکند (18،20،21). با اینحال، هنوز مشخص نیست که تمرین تداومی با شدت متوسط تا چه اندازه میتواند اجزای مختلف مسیر گاباآرژیک را بهصورت همزمان در هیپوکمپ مبتلا به صرع تحتتأثیر قرار دهد. با وجود مطالعات انجامشده درباره اثرات ضدتشنجی فعالیت ورزشی، شواهد محدودی درباره اثر مستقیم تمرینات تداومی با شدت متوسط Moderate intensity continuous training (MICT) بر سیستم گاباارژیک در هیپوکمپ وجود دارد. بهویژه بررسی همزمان سطح GABA، GAT3 و آنزیم¬های GAD65، GAD67 در هیپوکمپ بیماران یا مدلهای حیوانی مبتلا به صرع محدود است. از سوی دیگر، نقش GAT3 بهعنوان یکی از تنظیمکنندههای مهم پاکسازی خارجسلولی GABA در پاسخ به تمرین ورزشی در مدلهای صرع هنوز بهخوبی روشن نیست. با توجه به آسیبپذیری بالای هیپوکمپ در برابر تشنج و نقش آن در تنظیم شبکههای نورونی، بررسی تغییرات مولکولی این ناحیه پس از مداخله ورزشی میتواند درک عمیقتری از مکانیسمهای حفاظتی ورزش ارائه دهد. بنابراین، پژوهش حاضر با هدف بررسی اثر ۸ هفته تمرینات MICT بر بیان پروتئین GABA، آنزیمهای GAD65 و GAD67 و همچنین ناقل GAT3 در هیپوکمپ موشهای صحرایی مبتلا به صرع طراحی شده است تا به روشن شدن نقش احتمالی ورزش در تعدیل مسیرهای مهاری عصبی و توسعه رویکردهای درمانی مکمل برای صرع کمک کند.
روش بررسی
حیوانات: در این پژوهش از ۳۲ سر موش صحرایی نر ویستار با سن ۶ تا ۸ هفته و وزن متوسط 9/14±6/226 گرم استفاده شد که از مؤسسه انستیتو پاستور ایران تهیه گردیدند. حیوانات بهصورت تصادفی در چهار گروه مساوی قرار گرفتند: ۱-گروه کنترل سالم: موش¬های سالم که هیچگونه القای صرع یا مداخله تمرینی دریافت نکردند؛ ۲-گروه صرع: موشهای که صرع در آنها با تزریق درونهیپوکمپی کاینیکاسید القا شد؛ ۳- گروه شم: موش¬های که تمام مراحل بیهوشی، تثبیت در دستگاه استریوتاکسیک و ورود سوزن را مشابه گروه صرع دریافت کردند، اما کاینیکاسید به آنها تزریق نشد؛ ۴- گروه صرع+MICT: موش¬های که پس از القای صرع، پروتکل تمرین تداومی با شدت متوسط را بهمدت ۸ هفته اجرا کردند. موش¬ها در شرایط محیطی کنترلشده شامل دمای ۲6–۲2 درجه سانتیگراد، رطوبت 6۵–5۵ درصد و چرخه روشنایی–تاریکی ۱۲:۱۲ نگهداری شدند و دسترسی آزادانه به آب و غذای استاندارد داشتند.
القاء صرع: یک هفته پس از سازگاری حیوانات با محیط، موش¬ها با تزریق داخل صفاقی کلرال¬هیدرات 7% بی¬هوش شدند. القای صرع با تزریق درونهیپوکمپی کاینیک اسید (5/2 میکروگرم) تحت هدایت دستگاه استریوتاکسیک انجام شد. در گروه شم، تمامی مراحل بیهوشی، تثبیت در دستگاه استریوتاکسیک و ورود سوزن به هیپوکمپ مشابه گروههای دریافتکننده کاینیکاسید انجام شد،. این گروه برای کنترل اثرات ناشی از جراحی، بدون القای صرع، در طراحی پژوهش گنجانده شد. بروز تشنجها با استفاده از مقیاس رفتاری راسین ارزیابی و موفقیت القا تأیید شد. معمولاً نخستین حملات بین ۳۰ تا ۴۰ دقیقه پس از تزریق مشاهده گردید. شدت تشنجها مطابق طبقهبندی پنج مرحلهای راسین شامل: 1- خیره شدن؛ 2- حرکات خودکار صورت؛ 3- کلونوس اندامهای جلویی؛ 4- لرزش و افتادن؛ ۵- تشنج تونیک–کلونیک همراه با دویدن، ثبت شد (22).
پروتکل تمرینی: طراحی پروتکل براساس مطالعه مارتینز و همکاران در سال 2018 انجام گرفت (23). برنامه تمرینی به مدت ۸ هفته، پنج جلسه در هفته، هر جلسه 45 دقیقه و بهصورت تداومی با شدت متوسط اجرا شد. هر جلسه شامل 5 دقیقه گرم کردن و 40 دقیقه دویدن با سرعت 60% حداکثر سرعت دویدن (Vmax) بود. برای تعیین Vmax، ابتدا حیوانات ۵ دقیقه با سرعت ۱۲ متر در دقیقه گرم شدند، سپس سرعت هر ۳ دقیقه سه متر افزایش یافت. آزمون زمانی خاتمه یافت که حیوان، باوجود تشویق، قادر به ادامه دویدن نبود. آخرین سرعتی که حیوان توانست آن را حفظ کند، بهعنوان Vmax در نظر گرفته شد. این آزمون در ابتدای مطالعه (هفته صفر) و مجدداً در پایان هفته چهارم تکرار شد و سرعت تمرین متناسب با نتایج جدید تنظیم گردید.
پایش فراوانی تشنج: شدت تشنجها هفته هشتم، طی بازه زمانی شش صبح تا شش عصر مورد ارزیابی قرار گرفت. در این مدت پنج مشاهدهگر آموزشدیده بهطور مداوم قفسهای حیوانات را تحتنظر داشتند. لازم به ذکر است که مشاهدهگران نسبت به گروهبندی حیوانات آگاهی نداشتند. شدت تشنجها بر اساس مقیاس اصلاحشده راسین، مطابق با دستورالعمل¬های پیشین، ثبت گردید (22).
بافتبرداری و سنجش پروتئینها: برای کاهش اثرات حاد ناشی از آخرین جلسه تمرین و ارزیابی سازگاریهای نسبتاً پایدار ناشی از دوره تمرینی، نمونهبرداری ۴۸ ساعت پس از پایان آخرین جلسه تمرین انجام شد. انتخاب این فاصله زمانی بر این اساس بود که برخی پاسخهای فیزیولوژیک و مولکولی ناشی از یک جلسه تمرین میتوانند تا ۲۴ الی ۴۸ ساعت باقی بمانند و نمونهبرداری زودهنگام ممکن است تفکیک اثرات حاد آخرین جلسه تمرین از سازگاریهای مزمن تمرینی را دشوار کند (24،25). حیوانات با تزریق داخلصفاقی کتامین 50–30 میلیگرم بر کیلوگرم و زایلازین 5–3 میلیگرم بر کیلوگرم بیهوش شدند. پس از خارجسازی مغز، بافت هیپوکمپ بهسرعت جدا و تا زمان انجام آزمایش در دمای ۷۰- درجه سانتیگراد نگهداری شد. برای استخراج پروتئین، نمونههای هیپوکمپ در ۱۰۰ میکرولیتر محلول لیز سلولی Pro-PREP™ حاوی مهارکننده پروتئاز همگنسازی شدند. تمام مراحل استخراج پروتئین روی یخ انجام شد تا از تخریب حرارتی پروتئینها جلوگیری شود. سپس نمونهها بهمدت ۲۰ دقیقه در دمای ۲۰- درجه سانتیگراد قرار گرفتند و پس از آن با سرعت ۱۳۰۰۰ دور در دقیقه بهمدت ۱۵ دقیقه در دمای ۴ درجه سانتیگراد سانتریفیوژ (Hettich universal 320R, Germany) شدند. محلول رویی جمعآوری شد و غلظت پروتئین کل با استفاده از کیت BCA (iNtRON Biotechnology, Korea) و دستگاه اسپکتروفتومتر(Smartspec Plus spectrophotometer, Bio-Rad) اندازهگیری گردید. برای انجام وسترنبلات، مقدار ۵۰ میکروگرم از پروتئین کل هر نمونه با بافر لاملی مخلوط و بهمدت ۵ دقیقه جوشانده شد. سپس نمونهها روی ژل پلیآکریلآمید SDS-PAGE با ژل جداکننده %10 و ژل متراکمکننده %5 بارگذاری شدند. الکتروفورز ابتدا با ولتاژ ۸۰ ولت و سپس با ولتاژ ۱۸۰ ولت انجام شد. پس از جداسازی پروتئینها بر اساس وزن مولکولی، پروتئینها از ژل به غشای PVDF با قطر منافذ دو میکرومتر منتقل شدند. انتقال پروتئینها در بافر ترانسفر و با جریان ۳۰۰ میلیآمپر بهمدت ۷۵ دقیقه انجام شد. کیفیت انتقال پروتئینها با رنگآمیزی پونسو S بررسی گردید. پس از انتقال، غشاها بهمدت یک ساعت در دمای اتاق با محلول مسدودکننده شامل TBST و%۵ آلبومین سرم گاوی مسدود شدند. سپس غشاها با آنتیبادیهای اولیه اختصاصی علیه GABA، GAD65، GAD67 و GAT3 در دمای ۴ درجه سانتیگراد بهمدت یک شب انکوبه شدند. پس از شستشو با TBST، غشاها با آنتیبادی ثانویه کونژوگه با HRP بهمدت یک ساعت در دمای اتاق انکوبه شدند. در ادامه، باندهای پروتئینی با استفاده از محلول ECL آشکارسازی شدند. شدت باندهای حاصل با استفاده از نرمافزار ImageJ اندازهگیری شد. برای کنترل تفاوت در میزان بارگذاری پروتئین، شدت باندهای مربوط به هر پروتئین نسبت به β-actin نرمالسازی گردید و مقادیر نهایی بهصورت نسبت بیان نسبی پروتئین هدف به β-actin گزارش شد (26،27).
تجزیه وتحلیل آماری
داده¬ها بهصورت میانگین Mean و انحراف معیار Standard deviation (Mean ±SD) گزارش شدند. برای متغیرهای، GABA، GAD65، GAD67 و GAT3 آنوای یکطرفه One-way ANOVA با آزمون تعقیبی توکی (Tukey’s post hoc) برای مقایسه چندگانه استفاده شد. نرمال بودن دادهها با آزمون آزمون شاپیرو-ویلک Shapiro Wilk و همگنی واریانسها با آزمون لون Leven ارزیابی شد. با توجه به اینکه القای صرع تنها در گروههای صرع و MICT انجام شد، مقایسه شدت و فراوانی تشنج صرفاً بین این دو گروه و با استفاده از آزمون Mann–Whitney U انجام شد. سطح معناداری 05/0درنظر گرفته شد و تمامی تحلیلها با نرمافزارversion 16 SPSS انجام شد.
نتایج
GABA: نتایج آزمون تحلیل واریانس یکطرفه نشان داد که بین گروه¬های پژوهشی تفاوت معنا¬داری در متغیر GABA وجود دارد (0001/0>P ، 846/199 = (3،28) درجه آزادی). آزمون تعقیبی توکی نشان داد، در مقایسه بین گروه صرع و کنترل و صرع و شم اختلاف معنادار وجود دارد اما بین گروه صرع و صرع+MICT اختلاف معناداری وجود ندارد (شکل 1).
GAD67: نتایج آزمون تحلیل واریانس یکطرفه نشان داد که بین گروه¬های پژوهشی تفاوت معناداری در متغیر GAD67 وجود دارد (0001/0 >P ، 786/75 = (3،28) درجه آزادی). آزمون تعقیبی توکی نشان داد بین گروه¬های صرع و کنترل، شم و صرع و همچنین صرع و صرع+MICT اختلاف معنادار وجود دارد (شکل2).
GAD65: نتایج آزمون تحلیل واریانس یکطرفه نشان داد که بین گروه¬های پژوهشی تفاوت معناداری در متغیر GAD65 وجود دارد (0001/0>P ، 271/126 = (3،28) درجه آزادی). آزمون تعقیبی توکی نشان داد که در مقایسه بین گروه صرع با کنترل و صرع با شم اختلاف معنادار وجود دارد اما بین گروه صرع و صرع+MICT اختلاف معنادار وجود ندارد (شکل3).
GAT3: نتایج آزمون تحلیل واریانس یکطرفه نشان داد که بین گروههای پژوهشی تفاوت معناداری در متغیر GAT3 وجود دارد (0001/0>P ، 814/34 = (3،28) درجه آزادی). آزمون تعقیبی توکی نشان داد که در مقایسه بین گروه صرع و کنترل اختلاف معنادار وجود دارد و سطح GAT3 در گروه صرع بهطور قابلتوجهی بالاتر از تمامی گروههای دیگر بود. همچنین بین گروه صرع و صرع+MICT و صرع با شم اختلاف معنادار وجود داشت و سطح GAT3 در گروه صرع+MICT کمتر بود. (شکل 4).
شدت تشنج: نتایج آزمون Mann–Whitney U نشان داد که شدت تشنج در گروه MICT در مقایسه با گروه صرع، در شش روز از هفت روز متوالی هفته هشتم بهطور معناداری کمتر بود. این اختلاف در روز اول (5/12=U، 003/0=p)، روز دوم (34=U، 247/0=p)، روز سوم (5/17=U، 0.011=p)، روز چهارم (5/19=U، 019/0=p)، روز پنجم (13=U، 004/0=p)، روز ششم (20=U، 023/0=p)، روز هفتم (15=U، 007/0=p) مشاهده شد؛ در حالیکه در روز دوم تفاوت معناداری بین دو گروه وجود نداشت. دادهها بهصورت میانه گزارش شدند و در تمامی روزهای ارزیابی، میانه شدت تشنج در گروه MICT پایینتر از گروه صرع بود. در مجموع، این یافتهها نشان میدهد که تمرین MICT با کاهش نسبتاً پایدار شدت تشنج طی هفته پایانی پژوهش همراه بوده است (شکل 5).
شکل1: تغییرات سطوح بیان پروتئین GABA در هیپوکمپ موش¬های مبتلا به صرع.
شکل2: تغییرات سطوح بیان پروتئینGAD67 در هیپوکمپ موش¬های مبتلا به صرع.
شکل3: تغییرات سطوح بیان پروتئین GAD65 در هیپوکمپ موش¬های مبتلا به صرع
شکل4: تغییرات سطوح بیان پروتئین GAT3 در هیپوکمپ موش¬های مبتلا به صرع.
شکل 5: تغییرات شدت تشنج بین دوگروه صرع و MICT در طول هفته هشتم
بحث
یافتههای اصلی مطالعه: یافتههای مطالعه حاضر نشان داد که القای صرع با کاینیکاسید موجب کاهش معنادار سطوح GABA، GAD65، GAD67 و افزایش معنادار GAT3 در هیپوکمپ موش¬ها شد. این الگو نشان میدهد که صرع القاشده با کاینیکاسید با تضعیف ظرفیت مهاری سیستم گاباآرژیک همراه است. کاهش همزمان GABA و آنزیمهای سنتزکننده آن، بهویژه GAD67، میتواند بیانگر کاهش توان تولید و حفظ تون مهاری در هیپوکمپ باشد؛ موضوعی که از نظر عملکردی میتواند به افزایش تحریکپذیری نورونی و تسهیل بروز فعالیتهای تشنجی منجر شود. این یافته با گزارشهایی همسو است که کاهش GABA و GADها را در برخی مدلهای حیوانی و انسانی صرع گزارش کردهاند (3،21،28،29). نکته قابلتوجه دیگر در نتایج حاضر، افزایش GAT3 در گروه صرع بود. GAT3 عمدتاً در آستروسیتها بیان میشود و در پاکسازی GABA از فضای خارجسلولی نقش دارد؛ از اینرو، افزایش آن میتواند باعث افزایش برداشت GABA و کاهش دسترسی خارجسلولی آن شود و بهصورت بالقوه مهار تونیک یا سیناپسی را تضعیف کند (30). بنابراین، الگوی مشاهدهشده در گروه صرع، یعنی کاهش GABA همراه با افزایش GAT3، میتواند در مجموع به سمت کاهش کارایی مهار گاباآرژیک و افزایش تحریکپذیری تشنجی تفسیر شود. از سوی دیگر، ۸ هفته تمرینات MICT موجب کاهش معنادار شدت تشنجها، افزایش معنادار GAD67و کاهش معنادار GAT3 در هیپوکمپ موشهای مبتلا به صرع شد، در حالیکه تغییر معناداری در GABA و GAD65 مشاهده نشد. بنابراین، بهنظر میرسد تمرین تداومی با شدت متوسط بخشی از اختلال گاباآرژیک ناشی از صرع را عمدتاً از طریق افزایش ظرفیت سنتز پایه GABA و کاهش پاکسازی خارجسلولی آن تعدیل کرده باشد.
مقایسه با مطالعات قبلی: اثر مهاری گابا بر تحریک پذیری عصبی در مغز بالغ در درجه اول توسط اتصال آن به گیرندههای GABA-A انجام می شود که منجر به هجوم یون های کلرید (Cl−) و هایپرپلاریزاسیون سلولی میشود، اگرچه اثرات آن بر سایر زیرگروه های گیرنده گابا نیز ممکن است در این امر نقش داشته باشد (3). همچنین، از بین رفتن یا اختلال عملکرد اینترنورونهای مهاری میتواند با کاهش آزادسازی GABA، کاهش مهار سلولهای اصلی تحریکی و تسهیل بروز تشنج و صرع همراه باشد (6). در همین راستا، سیلورمن و همکاران در سال 2018 گزارش کردند که GABA-T یکی از آنزیمهای اصلی در کاتابولیسم GABA است و مهار این آنزیم میتواند با افزایش سطح GABA، تقویت مهار عصبی و کاهش فعالیت بیشازحد نورونی در صرع همراه باشد (5). افزایش GAD67 پس از تمرین از این جهت اهمیت دارد که GAD67 بیشتر با تولید پایه GABA و حفظ تون مهاری مرتبط است، در حالیکه GAD65 بیشتر در شرایط وابسته به فعالیت و تنظیم سریعتر انتقال گاباآرژیک نقش دارد (18). این یافته با مطالعه لیم و همکاران در سال 2015 همسو است؛ آنها گزارش کردند که تشنج ناشی از پیلوکارپین موجب کاهش بیان GAD67 در ناحیه CA1 هیپوکمپ میشود و تمرین با نوارگردان میتواند بیان GAD67 را در هیپوکمپ موش¬های مبتلا به صرع افزایش دهد (21). همچنین گزارش شده است که فعالیت ورزشی میتواند مسیرهای مرتبط با BDNF و TrkB، بقا و عملکرد نورونهای گاباآرژیک را در موش¬های مبتلا به صرع بهبود دهد (21).
مکانیسم¬های پیشنهادی: یافته مهم دیگر مطالعه حاضر، کاهش معنادار بیان GAT3 پس از ۸ هفته تمرینات MICT بود. از آنجا که GAT3 در پاکسازی GABA نقش دارد، کاهش بیان آن میتواند به افزایش مدت حضور GABA در فضای خارجسلولی و تقویت سیگنالدهی مهاری کمک کند (30). بنابراین، کاهش GAT3 همراه با افزایش GAD67 میتواند بهصورت یک الگوی همافزا در جهت تقویت مهار و بهبود تون مهاری در شبکههای هیپوکمپی تفسیر شود. تا آنجا که بررسی منابع نشان میدهد، مطالعه مستقیمی که اثر فعالیت ورزشی را بر GAT3 در مدل صرع بررسی کرده باشد محدود است؛ بنابراین، کاهش GAT3 پس از تمرین MICT میتواند یکی از جنبههای جدید مطالعه حاضر باشد. این یافته پیشنهاد میکند که بخشی از اثرات مفید MICT احتمالاً از طریق تنظیم هموستاز GABA، یعنی افزایش ظرفیت تولید و کاهش پاکسازی خارجسلولی آن، اعمال میشود. همچنین، با توجه به اینکه التهاب عصبی و استرس اکسیداتیو میتوانند عملکرد سیستم گاباآرژیک را مختل کنند (18) و شواهدی وجود دارد که فعالیت ورزشی میتواند این عوامل را در زمینه صرع کاهش دهد (17،31)، میتوان این فرضیه را مطرح کرد که بهبود GAD67 و کاهش GAT3 تا حدی از طریق کاهش فشارهای التهابی–اکسیداتیو و تعدیل عملکرد گلیال رخ داده باشد. با اینحال، چون در مطالعه حاضر شاخصهای التهاب عصبی و استرس اکسیداتیو بهطور مستقیم اندازهگیری نشدند، این تفسیر باید با احتیاط مطرح شود. در مقابل، در مطالعه حاضر تغییر معناداری در GABA و GAD65 پس از ۸ هفته تمرینات MICT مشاهده نشد. عدم تغییر معنادار GAD65 میتواند به ماهیت عملکردی آن مربوط باشد؛ زیرا GAD65 بیشتر در پاسخهای وابسته به فعالیت و نیازهای سریع سیناپسی نقش دارد و ممکن است برای بروز تغییرات قابل تشخیص در آن، مدت طولانیتر تمرین، شدت متفاوت یا زمان نمونهبرداری دیگری لازم باشد (32). همچنین، عدم افزایش معنادار سطح GABA با وجود افزایش GAD67 ممکن است نشان دهد که تغییرات تولید، برداشت، ذخیرهسازی و متابولیسم GABA الزاماً بهصورت همزمان و همجهت رخ نمیدهند.
محدودیت¬ها و پیشنهادها
مطالعه حاضر چند محدودیت دارد. نخست، فقط سطح GABA و بیان پروتئینی GAD65،GAD67 و GAT3 در کل هیپوکمپ بررسی شد و نواحی مختلف هیپوکمپ مانند CA1، CA3و دنتیت ژایروس بهصورت جداگانه ارزیابی نشدند. دوم، شاخصهای التهاب عصبی، استرس اکسیداتیو و عوامل نوروتروفیک بهطور همزمان اندازهگیری نشدند؛ بنابراین، ارتباط مستقیم این مسیرها با تغییرات مشاهده شده در GAD67 و GAT3 قابل اثبات نیست. سوم، مطالعه فقط روی موش¬های صحرایی نر انجام شد و تعمیم نتایج به جنس ماده یا سایر مدلهای صرع نیازمند بررسیهای بیشتر است. پیشنهاد میشود در مطالعات آینده، اثر شدتها و مدتهای مختلف تمرین بر سیستم گاباآرژیک بررسی شود و علاوه بر سطح پروتئین، بیان ژنی، فعالیت آنزیمی، شاخصهای التهابی–اکسیداتیو و ثبتهای الکتروفیزیولوژیک نیز ارزیابی گردد. همچنین، بررسی جداگانه نواحی مختلف هیپوکمپ میتواند تصویر دقیقتری از اثرات تمرین بر مدارهای مهاری در صرع ارائه دهد.
نتیجهگیری
در نهایت، با توجه به نتایج این پژوهش میتوان نتیجه گرفت که القای صرع با کاینیکاسید موجب تضعیف مؤلفههای کلیدی سیستم مهاری در هیپوکمپ، شامل کاهش GABA، GAD65 و GAD67، و افزایش شاخص مرتبط با پاکسازی GABA یعنی GAT3 میشود. در مقابل، تمرینات MICT میتوانند بخشی از این اختلال را از طریق افزایش GAD67 و کاهش GAT3 تعدیل کنند. بنابراین، تمرین تداومی با شدت متوسط احتمالاً از مسیر بهبود نسبی ظرفیت مهار گاباآرژیک در هیپوکمپ، در کاهش اختلالات مرتبط با صرع نقش دارد.
سپاسگزاری
این مقاله برگرفته از رساله دکتری نویسنده اول میباشد. با تشکر از همه عزیزانی که ما را در اجرای این پژوهش یاری رساندند.
حامی مالی
ندارد.
تعارض در منافع
وجود ندارند.
ملاحظات اخلاقی
تمام مراحل این پژوهش توسط کمیته اخلاق دانشکده علوم ورزشی و تندرستی دانشگاه تهران به شماره IR.UT.SPORT.REC.1403.067 مورد تایید قرار گرفت.
اظهارنامه استفاده از فناوری هوش مصنوعی
در این پژوهش برای اصلاح چکیده انگلیسی از ChatGPT شرکت OpenAIاستفاده شده است. در نگارش و تجزیه و تحلیل دیتا ها از هوش مصنوعی استفاده نشده است.
دسترسپذیری داده ها
داده های خام این مطالعه از طریق درخواست از نویسنده مسئول ارائه خواهد شد.
مشارکت نویسندگان
محمد رضا کردی و امیر حسین صفار کهنه قوچان در ارائه ایده و طراحی مطالعه و سحر صمیمی در جمعآوری و تجزیه و تحلیل دادهها مشارکت داشته و همه نویسندگان در تدوین، ویرایش اولیه و نهایی مقاله و پاسخگویی به سوالات مرتبط با مقاله سهیم هستند.
References
1. Zhao W, Xie C, Zhang X, Liu J, Liu J, Xia Z. Advances in the mTOR signaling pathway and its inhibitor rapamycin in epilepsy. Brain Behav. 2023; 13(6): e2995.
2. Sarlo GL, Holton KF. Brain concentrations of glutamate and GABA in human epilepsy: A review. Seizure. 2021; 91: 213-27.
3. Perucca E, Bialer M, White HS. New GABA-Targeting Therapies for the Treatment of Seizures and Epilepsy: I. Role of GABA as a Modulator of Seizure Activity and Recently Approved Medications Acting on the GABA System. CNS Drugs. 2023; 37(9): 755-79.
4. Zhou Y, Danbolt NC. Glutamate as a neurotransmitter in the healthy brain. J Neural Transm (Vienna). 2014; 121(8): 799-817.
5. Silverman RB. Design and Mechanism of GABA Aminotransferase Inactivators. Treatments for Epilepsies and Addictions. Chem Rev. 2018; 118(7): 4037-70.
6. Liu YQ, Yu F, Liu WH, He XH, Peng BW. Dysfunction of hippocampal interneurons in epilepsy. Neurosci Bull. 2014; 30(6): 985-98.
7. Gulias-Cañizo R, Ruíz-Leyja ED, Sánchez-Castillo H, Parodí J, Ochoa-de la Paz LD. The role of GABA neurotransmitter in the human central nervous system, physiology, and pathophysiology. Rev Mex Neuroci. 2021; 22(2): 67-76.
8. Barzroodi Pour M, Bayat M, Navazesh A, Soleimani M, Karimzadeh F. Exercise improved the anti-epileptic effect of carbamazepine through gaba enhancement in epileptic rats. Neurochem Res. 2021; 46(8): 2112-30.
9. Yadav R, Han GW, Gati C. Molecular basis of human GABA transporter 3 inhibition. Nat Commun. 2025; 16(1): 3830.
10. DeLeeuw MB, Shen W, Tian X, Ding C, Randhave K, Kang JQ. 4-Phenylbutyrate restored GABA uptake, mitigated seizures in SLC6A1 and SLC6A11 microdeletions/3p- syndrome: From cellular models to human patients. Epilepsy Res. 2025; 210: 107514.
11. Mortensen JS, Bavo F, Smiszek Pedersen AP, Storm JP, Pape T, Frølund B, et al. Structural basis for selective inhibition of human GABA transporter GAT3. Nat Commun. 2026; 17:1774
12. Cavalcante BRR, Improta-Caria AC, Melo VH, De Sousa RAL. Exercise-linked consequences on epilepsy. Epilepsy Behav. 2021; 121(Pt A): 108079.
13. Häfele CA, Rombaldi AJ, Feter N, Häfele V, Gervini BL, Domingues MR, et al. Effects of an exercise program on health of people with epilepsy: A randomized clinical trial. Epilepsy Behav. 2021; 117: 107904.
14. Feter N, Spanevello RM, Soares MSP, Spohr L, Pedra NS, Bona NP, et al. How does physical activity and different models of exercise training affect oxidative parameters and memory? Physiol Behav. 2019; 201: 42-52.
15. Ribarič S. Physical Exercise, a Potential Non-Pharmacological Intervention for Attenuating Neuroinflammation and Cognitive Decline in Alzheimer’s Disease Patients. Int J Mol Sci. 2022; 23(6): 3245.
16. Arida RM, Fernandes MJ, Scorza FA, Preti SC, Cavalheiro EA. Physical training does not influence interictal LCMRglu in pilocarpine-treated rats with epilepsy. Physiol Behav. 2003; 79(4-5): 789-94.
17. de Lima Rosa G, Guzzo EFM, Nunes SEB, Padilha RB, Domingues AM, Barbosa BB, et al. Aerobic exercise, alone or combined with an anti-inflammatory drug, reduces the severity of epileptic seizures and levels of central pro-inflammatory cytokines in an animal model of epileptic seizures. Epilepsy Res. 2022; 186: 107018.
18. Barzroodi Pour M, Bayat M, Golab F, Eftekharzadeh M, Katebi M, Soleimani M, et al. The effect of exercise on GABA signaling pathway in the model of chemically induced seizures. Life Sci. 2019; 232: 116667.
19. Cerqueira É, Marinho DA, Neiva HP, Lourenço O. Inflammatory Effects of High and Moderate Intensity Exercise-A Systematic Review. Front Physiol. 2019; 10: 1550.
20. Kami K, Taguchi Ms S, Tajima F, Senba E. Improvements in impaired GABA and GAD65/67 production in the spinal dorsal horn contribute to exercise-induced hypoalgesia in a mouse model of neuropathic pain. Mol Pain. 2016; 12: 1744806916629059.
21. Lim BV, Shin MS, Lee JM, Seo JH. Treadmill exercise prevents GABAergic neuronal loss with suppression of neuronal activation in the pilocarpine-induced epileptic rats. J Exerc Rehabil. 2015; 11(2): 80-6.
22. Racine RJ. Modification of seizure activity by electrical stimulation. II. Motor seizure. Electroencephalogr Clin Neurophysiol. 1972; 32(3): 281-94.
23. Martinez-Huenchullan SF, Maharjan BR, Williams PF, Tam CS, McLennan SV, Twigg SM. Differential metabolic effects of constant moderate versus high intensity interval training in high-fat fed mice: possible role of muscle adiponectin. Physiol Rep. 2018; 6(4): e13599.
24. Giusti B, Marini M, Rossi L, Lapini I, Magi A, Capalbo A, et al. Gene expression profile of rat left ventricles reveals persisting changes following chronic mild exercise protocol: implications for cardioprotection. BMC Genomics. 2009; 10: 342.
25. Darragh IAJ, O’Driscoll L, Egan B. Exercise Training and Circulating Small Extracellular Vesicles: Appraisal of Methodological Approaches and Current Knowledge. Front Physiol. 2021; 12: 738333.
26. Taylor SC, Posch A. The design of a quantitative western blot experiment. Biomed Res Int. 2014; 2014: 361590.
27. Schneider CA, Rasband WS, Eliceiri KW. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 2012; 9(7): 671-5.
28. Treiman DM. GABAergic mechanisms in epilepsy. Epilepsia. 2001; 42(Suppl 3): 8-12.
29. Feng Y, Wei ZH, Liu C, Li GY, Qiao XZ, Gan YJ, et al. Genetic variations in GABA metabolism and epilepsy. Seizure. 2022; 101: 22-9.
30. Scimemi A. Structure, function, and plasticity of GABA transporters. Front Cell Neurosci. 2014; 8: 161.
31. Xie Y, Gu Y, Li Z, Zhang L, Hei Y. Effects of exercise on different antioxidant enzymes and related indicators: a systematic review and meta-analysis of randomized controlled trials. Sci Rep. 2025; 15(1): 12518.
32. Kanaani J, Kolibachuk J, Martinez H, Baekkeskov S. Two distinct mechanisms target GAD67 to vesicular pathways and presynaptic clusters. J Cell Biol. 2010; 190(5): 911-25.
نوع مطالعه: پژوهشي |
موضوع مقاله:
فیزیولوژی ورزش
دریافت: 1404/10/17 | پذیرش: 1405/4/9 | انتشار: 1405/7/15
دریافت: 1404/10/17 | پذیرش: 1405/4/9 | انتشار: 1405/7/15
ارسال پیام به نویسنده مسئول
| بازنشر اطلاعات | |
 |
این مقاله تحت شرایط Creative Commons Attribution-NonCommercial 4.0 International License قابل بازنشر است. |